Примечание редакции. Это доклинический эксперимент на крысах с IHT (гипоксия–нормоксия), а не клиническое исследование IHHT или аппарата OXYTERRA. Дозы L-аргинина/L-NNA, 7% кислорода и лабораторные процедуры не предназначены для применения у людей. Большие таблицы оставлены в оригинальном PDF; ниже сохранён перевод основного научного текста с кратким представлением результатов. В группе L-NNA методика указывает 0.35 мг/кг, аннотация и другие разделы — 35 мг/кг. Расхождение не исправлено догадкой; по этой статье нельзя определять дозировки.
Аннотация
Предпосылки и цель. IHT рассматривается как средство повышения адаптационного потенциала при патологических состояниях, прежде всего острой гипоксии. Цель — оценить NO-зависимые механизмы по нитритам, нитратам, мочевине и общим полиаминам, ADP-стимулированное потребление кислорода и окислительное фосфорилирование в митохондриях сердца/печени, маркеры окислительного стресса крови и тканей крыс после IHT и острой гипоксии. Перед каждым сеансом вводили L-аргинин 600 мг/кг за 30 мин либо ингибитор NO-синтазы L-NNA 35 мг/кг за 30 мин.
Методы. Митохондриальное дыхание оценивали оксиграфией, микросомальное окисление и перекисное окисление липидов — биохимически. Изучали краткосрочные и отдалённые эффекты через 30, 60, 180 дней после последнего сеанса при введении L-аргинина, используя сукцинат и α-кетоглутарат как субстраты.
Результаты. IHT сопровождалась ростом эндогенного NO по стабильному метаболиту, нитрит-аниону: почти семикратно в плазме, более семикратно в эритроцитах. NO-зависимые преобразования энергообеспечения сердца/печени и интервальная адаптация сопровождались снижением мочевины и полиаминов в плазме/печени, но не эритроцитах. L-аргинин повышал нитрит-восстанавливающий компонент цикла NO, сохранявшийся до 180 дней.
Выводы. Эффекты IHT и нитрит-зависимого компонента в этой модели связаны с длительной адаптацией, ограничением липопероксидации, изменениями антиоксидантных ферментов и стабилизацией мембран эритроцитов, защищающими систему кислород-зависимых процессов.
Введение
Гипоксия — недостаточная доставка кислорода тканям и клеткам (Lee et al., 2019), например при высоте, болезнях лёгких или уменьшении кровотока (Huang et al., 2022). Недостаток кислорода нарушает клеточные функции; исследование гипоксии помогает понять механизмы и возможные терапевтические стратегии. Адаптация к ней широко распространена и считается одной из древнейших эволюционных форм. Первоначально патологическое понятие со временем приобрело физиологическое значение как ответ на внешние факторы. Особое внимание уделяют сердечно- и цереброваскулярным заболеваниям (Della Rocca et al., 2022).
IHT изучается как средство повышения адаптации, выносливости и работоспособности (Rybnikova et al., 2022; Sales de Campos et al., 2023; Timón et al., 2024). Циклы гипоксии и реоксигенации исследуют разные группы (Zhao et al., 2019; Urdampilleta Otegui and Roche Collado, 2024). Один из механизмов — транспорт и утилизация кислорода (Zhang et al., 2023): стимуляция EPO и эритроцитов увеличивает доставку тканям (Song et al., 2017).
Пользу связывают с митохондриальной функцией и окислительным фосфорилированием (Sokolova, 2018). IH влияет на митофагию и NO (Gong et al., 2020; Wang et al., 2021); удаление повреждённых митохондрий связано с деполяризацией и электрохимическим градиентом внутренней мембраны (Wu et al., 2021). Повышенное образование АФК может вызывать дозозависимый окислительный стресс (Iturriaga et al., 2015).
Оксид азота и адаптационный ответ
IHT может повышать синтез NO (Kurhaluk et al., 2023), вызывая вазодилатацию и улучшение кровотока/доставки кислорода. Его защитную роль при окислительном стрессе обсуждают Manukhina et al. (2006) и Liu et al. (2022). Возможные нейропротективные эффекты связывают с нейрогенезом, синаптической пластичностью и антиоксидантами; влияние на возрастное когнитивное снижение и нейродегенерацию обсуждается у Shobatake et al. (2022).
Метаболические эффекты связывают с чувствительностью к инсулину и обменом глюкозы (Prabhakar et al., 2020), потенциально важными при диабете 2-го типа, а также с обменом жировой ткани и контролем массы. Кардиоваскулярная адаптация включает эндотелиальную функцию, NO-зависимую вазодилатацию и кровоток; описаны снижение давления и улучшение сердечной функции (Zhu et al., 2020).
Противовоспалительные эффекты могут ограничивать хроническое слабовыраженное воспаление (Xiao et al., 2019). Клеточная адаптация включает HIF (Prabhakar et al., 2020), антиоксидантную защиту и устойчивость клеток (González-Candia et al., 2022). Авторы обсуждают потенциальные применения при ожирении, диабете, гипертензии, сердечно-сосудистых и дыхательных болезнях, а также как вспомогательный подход при Альцгеймере/Паркинсоне (Zhang et al., 2023). Широта физиологических эффектов служит основанием для дальнейшего изучения IHT.
Ранее (Kurhaluk et al., 2023) мы показали роль промежуточных продуктов цикла Кребса — сукцината SC и α-кетоглутарата KGL — в митохондриальном фосфорилировании при острой гипоксии и его изменении после интервальной адаптации крыс. Настоящее продолжение изучает NO в сердце/печени и модуляцию дыхания, микросомального и перекисного окисления при стрессе в разных тканях. Цель — уточнить метаболическое обоснование IH и перераспределение кислород-зависимых путей при краткосрочном и отдалённом адаптационном следе. Исследовали фосфорилирование и субстраты как механизмы клеточной устойчивости, потенциально полезные для будущих терапевтических подходов.
Материалы и методы
Животные и дизайн
Животные
Эксперименты соответствуют рекомендациям Совета ЕС, законам Польши/Украины, одобрены этической комиссией Черниговского коллегиума им. Т.Г. Шевченко 05/02/2019. Применялись Директива 2010/63/EU и польский закон от 15 января 2015 года о животных для научных/образовательных целей (Journal of Laws, 26 февраля 2015, пункт 266).
Экспериментальные группы
Самцов белых крыс массой 180–220 г содержали при 21 ±2°C со свободным доступом к пище и воде. Случайным образом распределили в десять групп.
1. Контроль без вмешательства.
2. Острая гипоксия AH: 7% O₂ в азоте 30 мин, перед воздействием 1 мл физраствора; поглотитель удалял CO₂ и водяной пар.
3. IHT: ежедневно 14 дней чередовали 10% O₂ в азоте и комнатный воздух 21% O₂ по 15 мин; перед каждым сеансом парентерально 1 мл физраствора.
4. IHT + AH: тот же 14-дневный режим; на следующий день после последнего сеанса тест 7% O₂ 30 мин, затем эвтаназия внутрибрюшинным пентобарбиталом натрия.
5. L-аргинин + IHT: 600 мг/кг массы тела перед каждым сеансом.
6. L-аргинин + IHT + AH: 600 мг/кг за 30 мин перед каждым днём IHT; после курса тест 7% O₂ в азоте 30 мин.
7. L-NNA (Nω-нитро-L-аргинин, ингибитор NO-синтазы) + IHT + AH: в описании этой группы оригинал указывает 0.35 мг/кг за 30 мин перед каждым днём IHT; после курса тест 7% O₂ 30 мин. В других разделах и подписях указано 35 мг/кг — расхождение не исправлено догадкой.
8. L-аргинин + IHT, 30 дней: 600 мг/кг за 30 мин перед каждым сеансом; декапитация через 30 дней после курса.
9. То же с исследованием через 60 дней.
10. То же с исследованием через 180 дней.
Всем крысам выполняли эвтаназию внутрибрюшинным пентобарбиталом натрия (Morbital, Biowet, Puławy), 200 мг/кг.
Образцы
Кровь брали сердечной пункцией под анестезией в пробирки с 10% EDTA и 3.8% цитратом натрия, хранили при 4°C и обрабатывали в течение 8 ч. Для плазмы центрифугировали 3000 об/мин 10 мин. Цельную кровь, плазму и эритроциты сразу анализировали; последние использовали для эритрограмм после гемолитических воздействий.
Печень и сердце извлекали сразу после декапитации; одна особь на митохондриальный препарат. Печень взвешивали, промывали холодным буфером 2 мМ K₂CO₃, 10 мМ HEPES, 1 мМ EGTA, pH 7.2. Для сердца — 180 мМ KCl, 0.5% бычьего сывороточного альбумина, 10 мМ HEPES, 1 мМ EGTA, pH 7.2. Митохондрии ресуспендировали; 4–6 мг белка/мл держали на льду (Kondrashova and Doliba, 1989). Подробные методы — Kurhaluk et al. (2023).
Микросомы печени выделяли по Wisniewski et al. (1987), подробно — Kurhaluk et al. (2023). Белок определяли методом Bradford (1976), стандарт — бычий сывороточный альбумин.
Оксиграфия митохондриального дыхания
Потребление O₂ измеряли электродом Кларка в камере 1 мл с магнитным перемешиванием и водяной баней, в нг O₂/мин/мг митохондриального белка (Chance and Williams, 1955a,b). Среда: 120 мМ KCl, 2 мМ K₂CO₃, 2 мМ KH₂PO₄, 10 мМ HEPES; pH 7.20 при 26°C поддерживали 1.0 N KOH. Субстраты: KGL 1 мМ, SC 0.35 мМ; ADP 0.2 мМ — акцептор фосфата. Ротенон 10 мкМ ингибировал комплекс I, малонат 2 мМ — конкурентно окисление SC комплексом II, позволяя оценить NADH-/FADH-зависимые пути. Состояния 2,3,4, V₃/V₄, ADP/O и Vph подробно описаны ранее (Kurhaluk et al., 2023).
Биохимические анализы
Аминопирин-N-деметилаза
Активность CYP450-зависимой аминопирин-N-деметилазы определяли по Karuzina and Archakov (1977) реакцией формальдегида с реактивом Нэша (Matsubara et al., 1977), при CYP450, NADPH и O₂. Среда содержала 3 мМ NADPH(H), 0.1 M Tris-гидрохлорида, 0.25 M Tris, 8 мМ аминопирина, 5 мМ MgCl₂. Активность выражали нмоль формальдегида/мин/мг микросомального белка.
Система оксида азота
NO оценивали спектрофотометрически по стабильному NO₂⁻ (Green et al., 1982), пмоль/мг белка. NO₃⁻ — по Brown and Cooper (1994), нмоль/мг. Мочевину определяли реакцией с диацетилмонооксимом (Kolb and Kamyshnikov, 1982), общие полиамины — по путресцину с 2,4-динитрофторбензолом (Faber et al., 1980).
Окислительный стресс
Липопероксидацию оценивали TBARS по Kamyshnikov (2004): нмоль малонового диальдегида MDA/мл крови или /мг тканевого белка. Определяли SOD (Kostiuk et al., 1990), CAT (Koroliuk et al., 1988), GR (Glatzle et al., 1974), GPx (Moin, 1986), церулоплазмин (Ravin, 1961) как показатели защиты и стресса.
Кислотная устойчивость эритроцитов
Устойчивость измеряли спектрофотометрией с 0.1 M HCl (Terskov and Gitelson, 1957), регистрируя динамику разрушения под действием гемолитического реагента.
Статистика
Результаты — среднее ±SD. Нормальность проверяли Колмогоровым–Смирновым и Лиллиефорсом (p >0.05), однородность дисперсий — Левеном. Группы сравнивали ANOVA, t-тестом Стьюдента и U-тестом Манна–Уитни, значимость p <0.05. Связи — корреляцией Спирмена (Zar, 1999). Расчёты в STATISTICA 13.3 (TIBCO, США).
Результаты
Митохондрии миокарда и печени
При острой гипоксии в сердце/печени резко повышалось ADP-стимулированное дыхание, особенно с SC как субстратом фосфорилирования, относительно контроля (таблицы 1,2). SC не повышал дыхательный коэффициент Чанса и снижал эффективность использования кислорода для добавленного ADP (ADP/O) в обеих тканях.
Снижение O₂ увеличивало окисление NAD-зависимого KGL относительно SC, особенно в сердце. Скорость фосфорилирования в сердце росла на 64.3% с SC и на 78.3% с KGL, p <0.05. В печени с SC она росла относительно контроля, но с KGL сходных изменений не было. Это указывает на участие KGL в поддержании энергии миокарда при остром недостатке O₂ и значение его функциональной нагрузки.
- При AH скорость фосфорилирования миокарда выросла на 64.3% с SC и 78.3% с KGL, p <0.05.
- Адаптация и острое воздействие по-разному меняли ADP/O, V₃/V₄ и митохондрии сердца/печени.
Полные таблицы 1, 2 — в оригинальной публикации
После IH митохондриальное энергообеспечение перестраивалось. SC повышал скорость фосфорилирования, особенно в миокарде, где были наибольшие V₃, V₃/V₄ и ADP/O. Предварительная интервальная адаптация защищала функциональное дыхание сердца при SC от последующей острой гипоксии и предотвращала снижение ADP/O. В печени изменения были слабее.
Окисление KGL в сердце при адаптационном следе после IHT усиливалось; это проявлялось и при острой гипоксии. Эффективная адаптация связана с преобладанием NAD-зависимого митохондриального окисления.
IHT и доноры оксида азота
Далее исследовали доноры NO: парентерально L-аргинин 600 мг/кг за 30 мин и ингибитор NO-синтазы Nω-нитро-L-аргинин 35 мг/кг за 30 мин. Потребление O₂ и фосфорилирование печени — в таблице 3.
L-аргинин по-разному влиял на субстраты Кребса. В печени снижал ADP-стимулированное дыхание при SC и KGL; при SC уменьшалась эффективность ADP-индуцированного фосфорилирования. Для KGL снижалась V₃ относительно эффектов SC. При L-аргинине и AH повышалось сопряжение дыхания/фосфорилирования с уменьшением эффективности KGL.
L-NNA давал эффекты, противоположные L-аргинину: увеличивал ADP-дыхание печени при SC/KGL относительно группы L-аргинина. При SC сопряжение и ADP/O оставались низкими, а эффективность KGL приближалась к необработанному контролю (таблица 3).
При AH окисление SC сопровождалось ростом эффективности использования O₂ для макроэргов, особенно после L-аргинина, возможно через срочную адаптацию. L-NNA усиливал роль редуктазных реакций относительно NO-синтазы, что благоприятнее для KGL в сходных условиях.
- L-аргинин и L-NNA разнонаправленно влияли на дыхание/фосфорилирование в зависимости от SC или KGL.
Полные таблицы 3 — в оригинальной публикации
Таблица 4 показывает митохондриальное дыхание/фосфорилирование и влияние AH при ежедневных L-аргинине 600 мг/кг или L-NNA 35 мг/кг за 30 мин перед IHT. При SC/KGL IHT достоверно снижала ADP-дыхание и фосфорилирование относительно одной AH.
L-аргинин повышал ADP/O при SC и V₃/V₄ при KGL относительно AH. L-NNA увеличивал потребление O₂ и фосфорилирование преимущественно KGL, V₃/V₄ и ADP/O относительно AH и IHT, но при SC уменьшал сопряжение и эффективность. Авторы связывают IHT с чередованием синтазных реакций при L-аргинине и редуктазных при L-NNA; преимущества этих зависимостей обнаруживались при AH.
- После IHT эффект острой гипоксии менялся; универсального одинакового ответа всех субстратов не получено.
Полные таблицы 4 — в оригинальной публикации
Тканевые различия липопероксидации
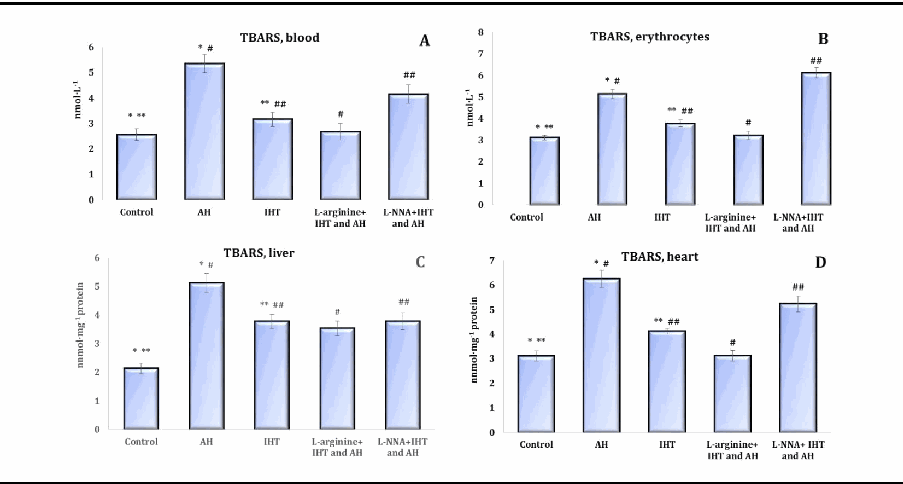
TBARS в цельной крови, эритроцитах, печени и сердце показывали тканевые зависимости. Усиление липопероксидации при AH уменьшалось после IHT (рисунок 1). L-аргинин перед IHT дополнительно снижал TBARS после AH, тогда как L-NNA повышал конечные продукты или не влиял относительно IHT/AH.
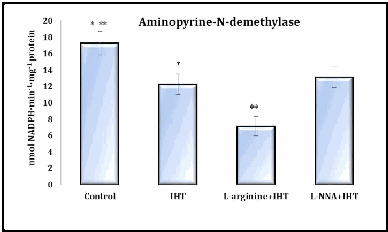
Микросомальное окисление субстратов/ксенобиотиков, в отличие от митохондриального, не связано с получением энергии, но потребляет существенную часть клеточного O₂. Для NO-регуляции изучали аминопирин-N-деметилазу — маркер микросомального окисления печени (рисунок 2).
После IHT соотношение смещалось к митохондриальным процессам: активность деметилазы снижалась относительно контроля. L-аргинин перед IHT дополнительно уменьшал микросомальное окисление, L-NNA обращал эффект. Адаптация связана с ограничением этого пути, усиленным экзогенными донорами NO.
Метаболиты NO и влияние L-аргинина
Адаптация усиливает NO-зависимые механизмы и меняет соотношение окислительного пути через NO-синтазу и неокислительного через аргиназу. Сумма нитритов/нитратов, отношение нитритов к ней, сумма мочевины/полиаминов помогают анализировать NO-компонент ответа на AH и IHT.
Изучали пулы нитритов, нитратов, мочевины и полиаминов в плазме, эритроцитах и печени при L-аргинине, IHT и последующей AH (рисунки 3–5).
При IHT нитрит-анион рос почти семикратно в плазме и более семикратно в эритроцитах. Более выраженный процентный рост последних связывают с участием гемоглобина в восстановлении нитритов до NO. В эритроцитах также росли нитраты и мочевина.
Общие полиамины достоверно росли в плазме/эритроцитах. IHT активировала синтез NO и орнитиновый/NO-циклы. В печени нитриты также повышались относительно необработанного контроля (рисунок 5).
L-аргинин вместе с IHT уменьшал измеренный NO относительно одной IHT. Однако при последующей AH введение предшественника перед каждым IHT повышало NO по нитритам относительно контроля. Сочетание собственной адаптации и фармакологической модуляции может участвовать в защите от гипоксии.
При AH достоверного роста нитратного компонента не было. Снижение нитратов плазмы, эритроцитов и печени может косвенно указывать на уменьшение превращения NO в NO₃⁻ и выведения. Пониженные AH уровни мочевины и полиаминов не восстанавливались до контроля; сходное отмечалось при IHT и IHT с L-аргинином.
Нитриты и нитраты после гипоксии
После IH нитрит-редуктазный компонент в эритроцитах возрастал (p <0.001), в плазме не менялся, в печени уменьшался. Сумма нитритов/нитратов печени сокращалась вдвое (p <0.001), а доля нитритов в сумме росла в плазме/печени. Это поддерживает NO-регуляцию адаптации.
NO-зависимые пути энергообеспечения и АФК при интервальной адаптации сопровождались снижением общей мочевины/полиаминов в плазме и печени. В эритроцитах эти соединения росли более чем в четыре раза относительно контроля.
Биоэнергетическая адаптация преимущественно связана с нитрит-редуктазным компонентом NO и выраженным ростом его активности в эритроцитах на фоне изменений плазмы и снижения в печени.
Антиоксидантная защита
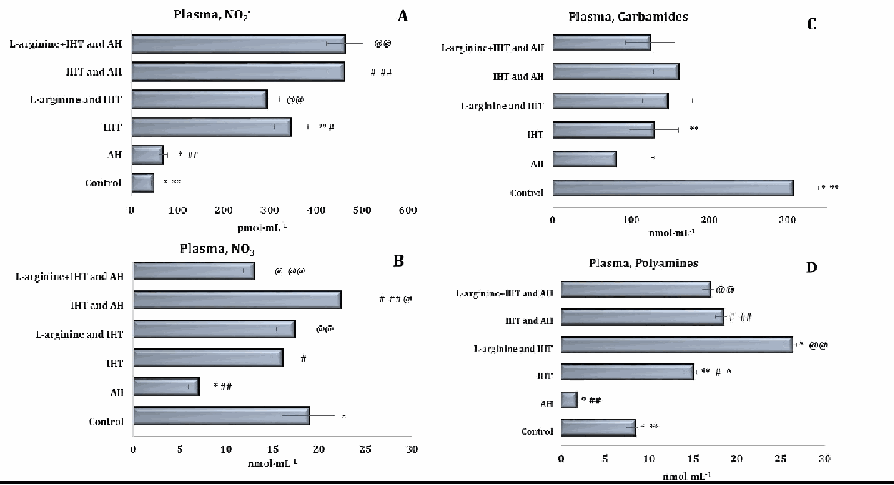
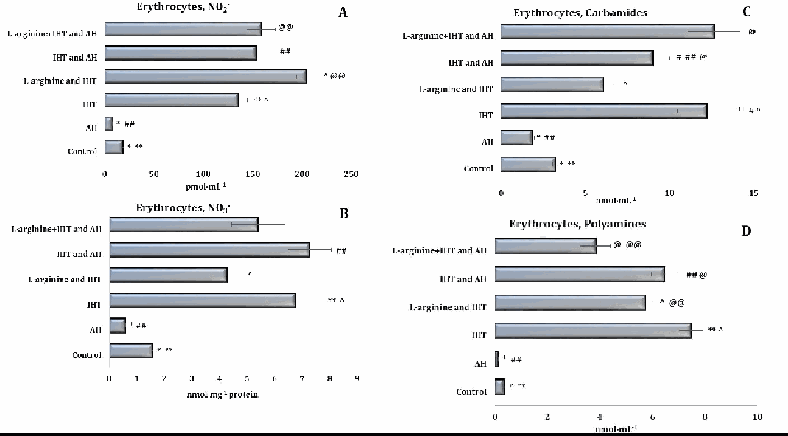
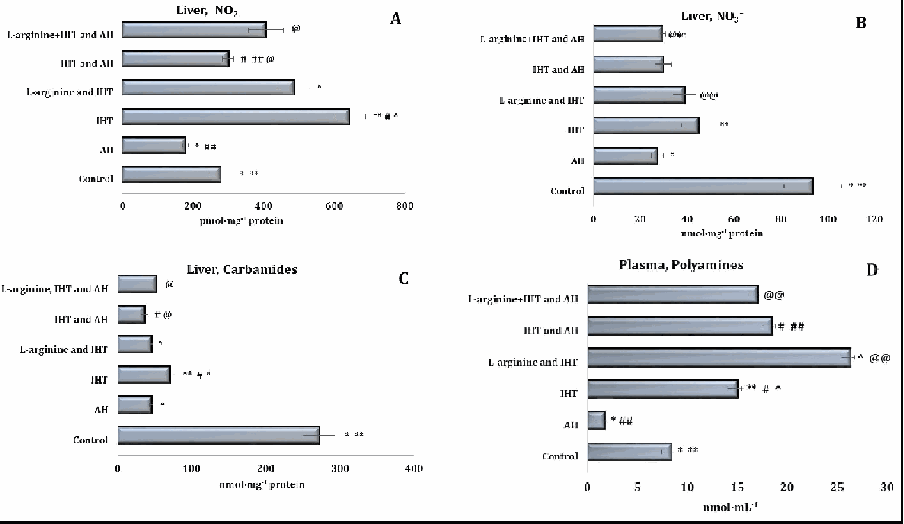
Для рисунков 3–5 p <0.05: * — контроль/AH; ** — контроль/IHT; # — IHT+AH/IHT; ## — IHT+AH/AH; ^ — L-аргинин+IHT/IHT; @ — L-аргинин+IHT+AH/IHT+AH; @@ — L-аргинин+IHT+AH/L-аргинин+IHT. M ±m сохранено как в подписях оригинала; в разделе статистики используется среднее ±SD.
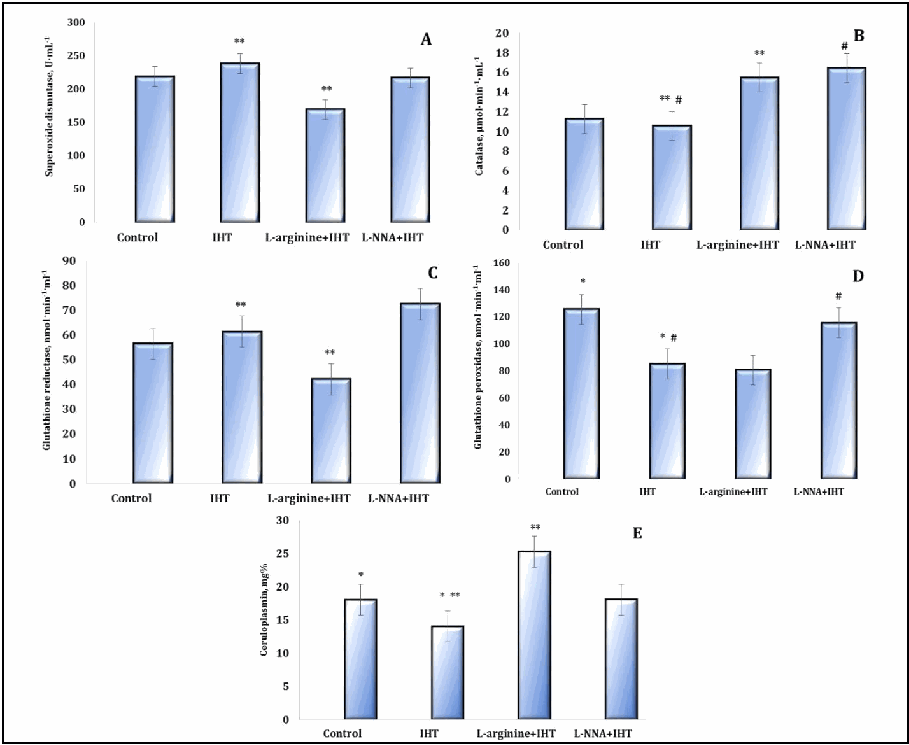
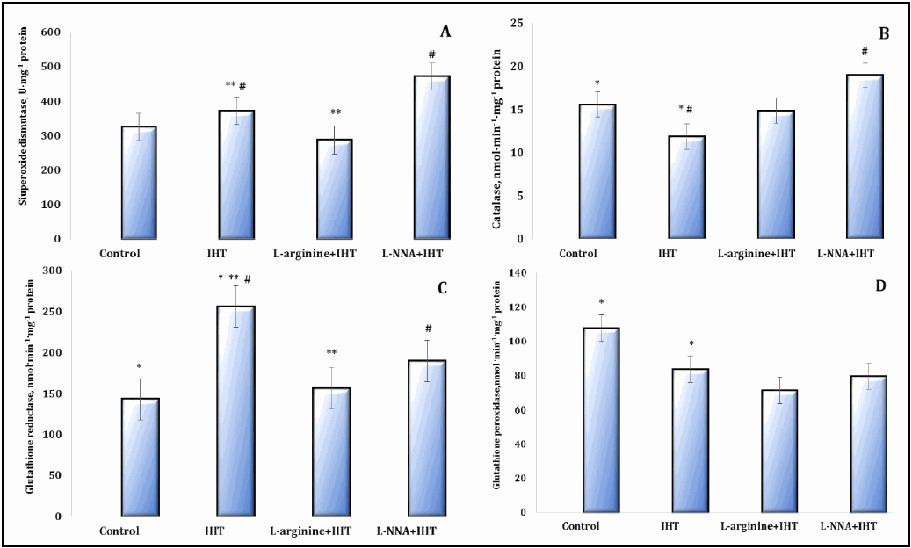
Изучение SOD, CAT, GR и GPx в крови/печени при IHT с L-аргинином или L-NNA выявило разнонаправленные изменения антиоксидантной защиты (рисунки 6,7).
Церулоплазмин CP — медьсодержащий антиоксидант, взаимодействующий с супероксидом и H₂O₂. Он окисляет Fe²⁺ до Fe³⁺ с восстановлением O₂ до воды, способствует связыванию железа ферритином и определяет окислительные свойства крови. Снижение CP уменьшает синтез гема в митохондриях. L-аргинин при IHT повышал CP (p <0.05), L-NNA снижал. NO-модуляция железосодержащих белков может участвовать в адаптационном следе при экстремальных факторах.
Отдалённые изменения митохондриальной функции
Для длительного адаптационного следа исследовали крыс через 30,60,180 дней после IHT с L-аргинином (рисунки 8,9). Изучали комплексы, окисляющие SC/KGL. Малонат, ингибитор сукцинатдегидрогеназы, позволял оценить независимое NAD-зависимое окисление, обычно модифицируемое быстрым окислением эндогенного SC.
Вклад NAD-зависимых субстратов в SC оценивали ротеноном. Он ограничивал энергообеспечение при SC, тогда как малонат повышал сопряжение и эффективность потребления O₂/фосфорилирования.
Малонат-чувствительный компонент при AH и IHT существенно зависит от вида воздействия. Дыхательный контроль Чанса и эффективность при KGL/SC представлены на рисунках 8,9.
Отдалённые изменения обмена NO
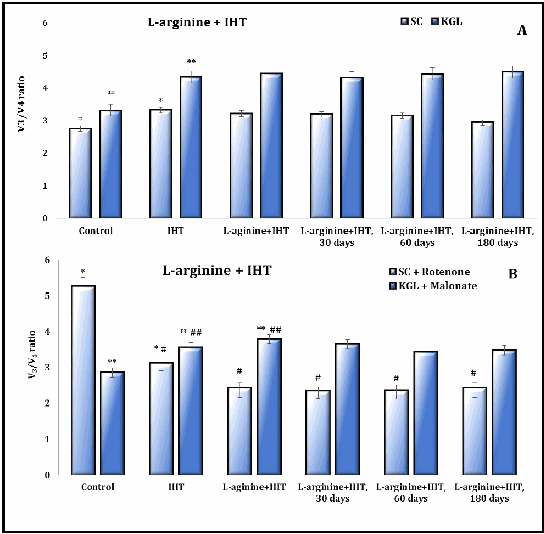
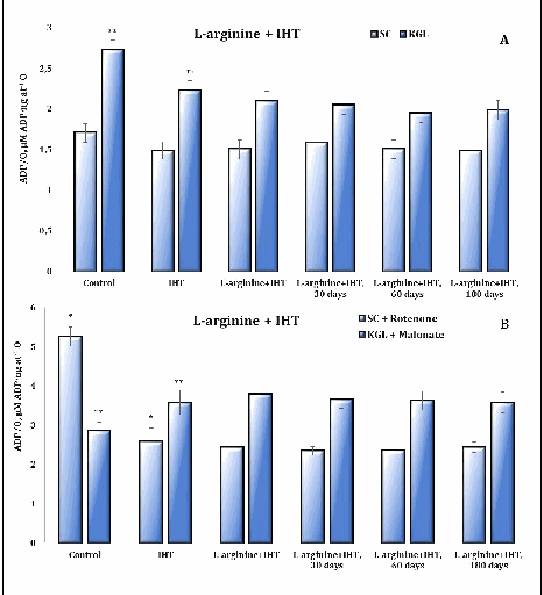
Изучали NO-зависимое окислительное/неокислительное соотношение через 30,60,180 дней после IHT с L-аргинином, сравнивая с контролем и непосредственным эффектом курса. После окончания никаких лекарств дополнительно не вводили. Изменения связывались с нитрит-восстанавливающим компонентом относительно нитратов, мочевины, полиаминов (таблица 5). L-аргинин перед сеансами уменьшал этот компонент, но его повышенный уровень сохранялся до 180-го дня.
- Исследовали отдалённые сроки 30,60,180 дней; изменений после дополнительных лекарств в эти сроки не было, их после курса не вводили.
Полные таблицы 5 — в оригинальной публикации
SOD, CAT, GR и GPx через 30,60,180 дней после гипоксии/реоксигенации представлены в таблице 6. Нитрит-зависимая стимуляция NO поддерживала низкую липопероксидацию и высокий антиоксидантный потенциал печени. Длительная адаптация связывается с этими ферментами и системной регуляцией кислород-зависимых процессов.
- Сохранялись изменения антиоксидантных ферментов и липопероксидации печени; данные относятся только к животной модели.
Полные таблицы 6 — в оригинальной публикации
После IHT активация SC острой гипоксией уменьшалась. Ограничение липопероксидации печени и NO-регуляция повышали эффективность митохондрий печени/миокарда. Авторы называют NADPH-оксидазный путь лимитирующим ранний этап гипоксии и связывают длительную адаптацию с его эффективностью, судя по ингибированию малонатом/ротеноном через 30,60,180 дней.
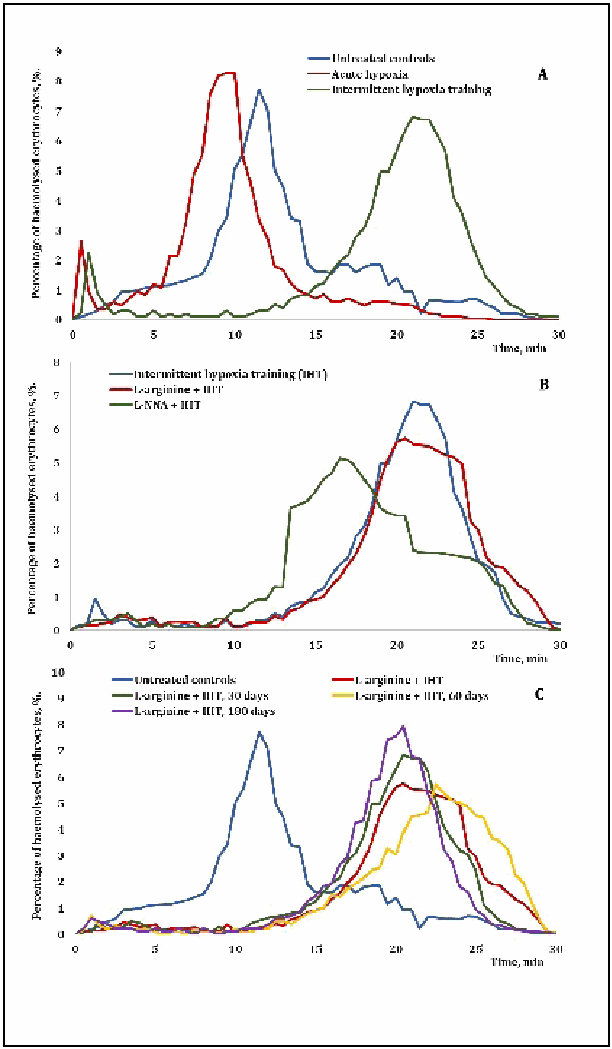
Кислотный гемолиз эритроцитов
Эритрограммы изучали после IHT/AH, при L-аргинине 600 мг/кг или L-NNA 35 мг/кг за 30 мин перед сеансом и через 30,60,180 дней (рисунок 10). IHT с L-аргинином повышала устойчивость и, предположительно, стабильность мембран. IHT с L-NNA уменьшала гемолиз, одновременно сокращая время наступления его максимума. В отдалённые сроки после IHT с L-аргинином гемолиз уменьшался, время до максимума увеличивалось.
Обсуждение
Работа показывает кратко- и долгосрочные NO-зависимые эффекты IHT в тканях крыс при L-аргинине и Nω-нитро-L-аргинине. Она дополняет Kurhaluk et al. (2023), биоэнергетические исследования Korbecki et al. (2021) и длительные эффекты IHT Serebrovska et al. (2019). Ранее изучали взаимодействия SC/KGL, NO, дыхания, микросомального окисления, липопероксидации и антиоксидантов. Взаимная конкуренция субстратов Кребса и NO связывается с холинергической регуляцией KGL и адренергическими производными — дофамином, DOPA, норадреналином, адреналином. Это расширяет понимание возможных защитных вмешательств при AH.
Во-первых, IHT связана с HIF и деметилированием гистонов, активирующим факторы адаптации (Martinez et al., 2022). AH после курса при окислении KGL/SC показала защиту непосредственных и отдалённых процессов печени/сердца. HIF регулирует ангиогенез, эритропоэз и глюкозу (Yeo, 2019; Guan et al., 2023; Wiśniewska et al., 2020), улучшая доставку/использование O₂.
AH снижала пулы нитритов/нитратов плазмы, эритроцитов, печени. При 7% O₂ в N₂ и биоэнергетической гипоксии доля нитритов в сумме росла, сильнее в плазме, чем печени. Снижалась сумма мочевины/полиаминов; изучалась вероятная роль неокислительного орнитинового/мочевинного пути (рисунки 3–5, таблица 4).
Во-вторых, синтез ATP после IHT связан с перераспределением SC/KGL. Другие описывали плотность митохондрий, дыхательную цепь и биогенез (Kang et al., 2020; Adzigbli et al., 2022). Это может повышать клеточную энергию и выносливость животных, проверенную здесь тестом AH.
Мембраны эритроцитов и антиоксидантная защита
Третий вывод — стабилизация мембран эритроцитов, снижение липопероксидации тканей и изменение антиоксидантов (рисунки 1,6,7,10; таблица 6). Авторы связывают это также с EPO почек при гипоксии (Wojan et al., 2023), эритропоэзом и транспортом O₂, возможным повышением устойчивости животных к AH и сохранением энергообеспечения.
В-четвёртых, NO — сосудорасширяющий сигнал — важен по конечным метаболитам, мочевине и полиаминам. Его рост может улучшать кровоток/доставку O₂ (Lizamore et al., 2017; Fryer et al., 2019). NO запускает стрессовые пути, включая AMPK (Yeo, 2019), поддерживая устойчивость, антиоксиданты и восстановление.
В крови, плазме, эритроцитах, сердце и печени кислород-зависимые эффекты формируются по-разному. Дополнительный L-аргинин выявил зависимости, потенциально интересные для терапии. Эта условно незаменимая аминокислота обсуждается в питании и профилактике сердечно-сосудистых заболеваний, особенно пожилых (Kurhaluk, 2023a,b). Данные этого эксперимента, однако, получены на животных.
Примечание редакции. Обсуждаемые авторами возможные применения и исследования других групп не превращают результаты данного эксперимента в клиническое доказательство. Здесь измеряли ткани и кровь животных; выводы о пользе добавок, профилактике заболеваний или лечении людей требуют отдельных исследований.
Адаптация при AH включает накопление NO в крови. Возможен рост свободного железа/гемоглобина (Weng et al., 2021) и депонирование в динитрозильных комплексах железа (Truzzi et al., 2021). Реоксигенация запускает радикальные процессы, высвобождение железа из ферритина и комплексы (Lewandowska et al., 2015). Рост ёмкости депо может связывать избыток NO, предотвращая проапоптоз (Vanin et al., 2017). При AH NO может повреждать клетки и усиливать АФК; при адаптации IHT — уменьшать их и экономить O₂ (Soodaeva et al., 2020), что особенно видно после AH у адаптированных крыс.
Различия умеренного и чрезмерного образования NO
Переключение противоположных эффектов NO не объяснено полностью. Возможно, периодический рост защищает, а чрезмерная продукция при AH повреждает. Тяжёлая гипоксия индуцирует iNOS (Zhao et al., 2019; Stachon et al., 2021), тогда как адаптация может усиливать eNOS мозга/сосудов (Kosutova et al., 2019; Wischmann et al., 2020). IHT запускает каскад энергообеспечения, NO-обмена, АФК и антиоксидантной эффективности.
Заключение
AH и адаптация IHT опосредованы NO-зависимыми механизмами, оценёнными по нитратам, нитритам, мочевине и полиаминам. Активация SC при AH уменьшается после IHT. Ограничение липопероксидации и NO-регуляция улучшают функцию митохондрий печени/миокарда. NADPH-оксидазный путь авторы считают лимитирующим раннюю гипоксию и участвующим в нарушении энергетической функции. Ингибирование малонатом/ротеноном через 30,60,180 дней указывает на отдалённые изменения. Усиление NO-зависимости связывают с длительной адаптацией.
Сведения о публикации
Благодарности. Поморскому университету в Слупске и Черниговскому коллегиуму им. Т.Г. Шевченко за поддержку.
Финансирование. Те же университеты, Слупск, Польша, и Чернигов, Украина.
Вклад авторов. Концепция: NK,HT,OL,PK; данные и формальный анализ: NK,HT; исследование: NK,HT,OL; методология и руководство: NK,HT; первый текст: NK,HT; пересмотр/редактирование: NK,HT,PK.
Этика. Рекомендации Совета ЕС, законодательство Польши/Украины, ARRIVE/NC3R; одобрение Черниговского коллегиума 05/02/2019. Соблюдены Директива 2010/63/EU и польский закон 15 января 2015 года (Journal of Laws, 26 февраля 2015, пункт 266).
Конфликт интересов
Авторы заявляют об отсутствии конкурирующих интересов.
Литература
Источники 1–8
Lee JW, Ko J, Ju C, Eltzschig HK. Hypoxia signaling in human diseases and therapeutic targets. Exp Mol Med 2019;51:1-13.
Huang Q, Yang J, Goh RMW, You M, Wang L, Ma Z. Hypoxia-Induced circRNAs in Human Diseases: From Mechanisms to Potential Applications. Cells 2022;11:1381.
Della Rocca Y, Fonticoli L, Rajan TS, Trubiani O, Caputi S, Diomede F, Pizzicannella J, Marconi G. Hypoxia: molecular pathophysiological mechanisms in human diseases. J Physiol Biochem 2022;78:739-752 .
Rybnikova EA, Nalivaeva NN, Zenko MY, Baranova KA. Intermittent Hypoxic Training as an Effective Tool for Increasing the Adaptive Potential, Endurance and Working Capacity of the Brain. Front Neurosci 2022;16:941740.
Sales de Campos P, Olsen WL, Wymer JP, Smith BK. Respiratory therapies for Amyotrophic Lateral Sclerosis: A state of the art review. Chron Respir Dis 2023;20:14799731231175915.
Timón R, González-Custodio A, Gusi N, Olcina G. Effects of intermittent hypoxia and whole-body vibration training on health-related outcomes in older adults. Aging Clin Exp Res 2024;36:6.
Zhao D, Yin CY, Ye XW, Wan ZF, Zhao DG, Zhang XY. Mitochondrial separation protein inhibitor inhibits cell apoptosis in rat lungs during intermittent hypoxia. Exp Ther Med 2019;17:2349-2358.
Urdampilleta Otegui A, Roche Collado E. Intermittent hypoxia in sport nutrition, performance, health status and body composition. Nutr Hosp 2024;41:224-229.
Источники 9–16
Zhang Q, Zhao W, Li S, Ding Y, Wang Y, Ji X. Intermittent Hypoxia Conditioning: A Potential Multi-Organ Protective Therapeutic Strategy. Int J Med Sci 2023;20:1551-1561.
Song J, Sundar K, Gangaraju R, Prchal JT. Regulation of erythropoiesis after normoxic return from chronic sustained and intermittent hypoxia. J Appl Physiol 2017;123:1671-1675.
Sokolova I. Mitochondrial Adaptations to Variable Environments and Their Role in Animals’ Stress Tolerance. Integr Comp Biol 2018;58:519-531.
Gong LJ, Wang XY, Gu WY, Wu X. Pinocembrin ameliorates intermittent hypoxia-induced neuroinflammation through BNIP3-dependent mitophagy in a murine model of sleep apnea. J Neuroinflammation 2020;17:337.
Wang W, Ding W, Huang H, Zhu Y, Ding N, Feng G, Zhang X. The role of mitophagy in the mechanism of genioglossal dysfunction caused by chronic intermittent hypoxia and the protective effect of adiponectin. Sleep Breath 2021;25:931-940.
Wu X, Gong L, Xie L, Gu W, Wang X, Liu Z, Li S. NLRP3 Deficiency Protects Against Intermittent Hypoxia- Induced Neuroinflammation and Mitochondrial ROS by Promoting the PINK1-Parkin Pathway of Mitophagy in a Murine Model of Sleep Apnea. Front Immunol 2021;12:628168.
Iturriaga R, Moya EA, Del Rio R. Inflammation and oxidative stress during intermittent hypoxia: the impact on chemoreception. Exp Physiol. 2015;100(2):149-155 doi: 10.1113/expphysiol.2014.079525.
Kondrashova MN, Doliba NM. Polarographic observation of substrate-level phosphorylation and its stimulation by acetylcholine. FEBS Lett 1989;243:153-155.
Источники 17–24
Kurhaluk N, Lukash O, Tkaczenko H. Do the Effects of Krebs Cycle Intermediates on Oxygen-Dependent Processes in Hypoxia Mediated by the Nitric Oxide System Have Reciprocal or Competitive Relationships? Cell Physiol Biochem 2023;57:426-451.
Manukhina EB, Downey HF, Mallet RT. Role of nitric oxide in cardiovascular adaptation to intermittent hypoxia. Exp Biol Med 2006;231:343-65.
Liu T, Schroeder H, Power GG, Blood AB. A physiologically relevant role for NO stored in vascular smooth muscle cells: A novel theory of vascular NO signaling. Redox Biol 2022;53:102327.
Shobatake R, Ota H, Takahashi N, Ueno S, Sugie K, Takasawa S. The Impact of Intermittent Hypoxia on Metabolism and Cognition. Int J Mol Sci 2022;23:12957.
Prabhakar NR, Peng YJ, Nanduri J. Hypoxia-inducible factors and obstructive sleep apnea. J Clin Invest 2020;130:5042-5051.
Zhu J, Kang J, Li X, Wang M, Shang M, Luo Y, Xiong M, Hu K. Chronic intermittent hypoxia vs chronic continuous hypoxia: Effects on vascular endothelial function and myocardial contractility. Clin Hemorheol Microcirc 2020;74:417-427.
Xiao F, Li X, Wang J, Cao J. Mechanisms of vascular endothelial cell injury in response to intermittent and/ or continuous hypoxia exposure and protective effects of anti-inflammatory and anti-oxidant agents. Sleep
González-Candia A, Candia AA, Paz A, Mobarec F, Urbina-Varela R, Campo AD, Herrera EA, Castillo RL. Cardioprotective Antioxidant and Anti-Inflammatory Mechanisms Induced by Intermittent Hypobaric Hypoxia. Antioxidants 2022;11:1043.
Источники 25–34
Wisniewski JA, Moody DE, Hammock BD, Shull LR. Interlobular distribution of hepatic xenobioticmetabolizing enzyme activities in cattle, goats and sheep. J Anim Sci 1987;64:210-215.
Bradford MM. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Anal Biochem 1976;72:248-254
Chance B, Williams GR. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem 1955;217:383-393.
Chance B, Williams GR. Respiratory enzymes in oxidative phosphorylation. III. The steady state. J Biol Chem. 1955b;217(1):409-427.
Chance B. Reaction of oxygen with the respiratory chain in cells and tissues. J Gen Physiol 1965;49:163- 195.
Karuzina II, Archakov AI. Estimation of the microsomal fraction of the liver and characteristic of its oxidative systems. Modern methods in biochemistry. Ed. V.I. Orekhovich. Moscow: Medicine, 1977;49-52.
Matsubara T, Touchi A, Tochino Y. Hepatic aminopyrine N-demethylase system: further studies of assay procedure. Jpn J Pharmacol 1977;27:127-136.
Green LC, Wagner DA, Glogowski J, Skipper PL, Wishnok JS, Tannenbaum SR. Analysis of nitrate, nitrite, and [15N]nitrate in biological fluids. Anal Biochem 1982;126:131-138.
Brown GC, Cooper CE. Nanomolar concentrations of nitric oxide reversibly inhibit synaptosomal respiration by competing with oxygen at cytochrome oxidase. FEBS Lett 1994;356:295-298.
Kolb VG, Kamyshnikov VS. A guide on clinical chemistry. Minsk: Republic of Belarus, 1982 336 p. Russian.
Источники 35–43
Faber J, Menashe M, Bachrach U, Desser H. Formation of putrescine and acetylspermidine from spermidine by cultured human lymphocytes. FEBS Lett 1980;121:165-168.
Kamyshnikov VS. A reference work for clinical and biochemical research and laboratory diagnostics. Moscow, MEDpress-inform, 2004 911 p. Russian.
Kostiuk VA, Potapovich AI, Kovaleva ZhV. Prostoĭ i chuvstvitel’nyĭ metod opredeleniia aktivnosti superoksid- dismutazy, osnovannyĭ na reaktsii okisleniia kvertsetina [A simple and sensitive method of determination of superoxide dismutase activity based on the reaction of quercetin oxidation]. Vopr Med Khim 1990;36:88-91.
Koroliuk MA, Ivanova LI, Maĭorova IG, Tokarev VE. Metod opredeleniia aktivnosti katalazy [A method of determining catalase activity]. Lab Delo. 1988;1:16-19.
Glatzle D, Vuilleumier JP, Weber F, Decker K. Glutathione reductase test with whole blood, a convenient procedure for the assessment of the riboflavin status in humans. Experientia 1974;30:665-667.
Moin VM. Prostoĭ i spetsificheskiĭ metod opredeleniia aktivnosti glutationperoksidazy v éritrotsitakh [A simple and specific method for determining glutathione peroxidase activity in erythrocytes]. Lab Delo. 1986;(12):724-727.
Ravin HA. An improved colorimetric enzymatic assay of ceruloplasmin. J Lab Clin Med 1961;58:161-168.
Terskov IA, Gitelson II. Method of chemical (acid) erythrograms. Biofizika 1957;2:259-266. th
Zar JH. Biostatistical Analysis. 4 ed., Prentice-Hall Inc., Englewood Cliffs, New Jersey, 1999.
Источники 44–50
Korbecki J, Simińska D, Gąssowska-Dobrowolska M, Listos J, Gutowska I, Chlubek D, Baranowska-Bosiacka I. Chronic and Cycling Hypoxia: Drivers of Cancer Chronic Inflammation through HIF-1 and NF-κB Activation: A Review of the Molecular Mechanisms. Int J Mol Sci 2021;22:10701.
Serebrovska TV, Portnychenko AG, Portnichenko VI, Xi L, Egorov E, Antoniuk-Shcheglova I, Naskalova S, Shatylo VB. Effects of intermittent hypoxia training on leukocyte pyruvate dehydrogenase kinase 1 (PDK-1) mRNA expression and blood insulin level in prediabetes patients. Eur J Appl Physiol 2019;119:813-823 .
Martinez CA, Jiramongkol Y, Bal N, Alwis I, Nedoboy PE, Farnham MMJ, White MD, Cistulli PA, Cook KM. Intermittent hypoxia enhances the expression of hypoxia inducible factor HIF1A through histone demethylation. J Biol Chem 2022;298:102536.
Yeo EJ. Hypoxia and aging. Exp Mol Med 2019;51:1-15.
Guan Y, Liu J, Gu Y, Ji X. Effects of Hypoxia on Cerebral Microvascular Angiogenesis: Benefits or Damages? Aging Dis 2023;14:370-385.
Wiśniewska A, Płoszczyca K, Czuba M. Changes in erythropoietin and vascular endothelial growth factor following the use of different altitude training concepts. J Sports Med Phys Fitness 2020;60:677-684.
Kang JJ, Fung ML, Zhang K, Lam CS, Wu SX, Huang XF, Yang SJ, Wong-Riley MTT, Liu YY. Chronic intermittent hypoxia alters the dendritic mitochondrial structure and activity in the pre-Bötzinger complex of rats. FASEB J 2020;34:14588-14601.
Источники 51–58
Adzigbli L, Sokolov EP, Wimmers K, Sokolova IM, Ponsuksili S. Effects of hypoxia and reoxygenation on mitochondrial functions and transcriptional profiles of isolated brain and muscle porcine cells. Sci Rep 2022;12:19881.
Wojan F, Stray-Gundersen S, Massoudian SD, Lalande S. Brief exposure to intermittent hypoxia increases erythropoietin levels in older adults. J Appl Physiol 2023;135:88-93.
Lizamore CA, Hamlin MJ. The Use of Simulated Altitude Techniques for Beneficial Cardiovascular Health Outcomes in Nonathletic, Sedentary, and Clinical Populations: A Literature Review. High Alt Med Biol 2017;18:305-321.
Fryer S, Stone K, Dickson T, Wilhelmsen A, Cowen D, Faulkner J, Lambrick D, Stoner L. The effects of 4 weeks normobaric hypoxia training on microvascular responses in the forearm flexor. J Sports Sci 2019;37:1235-1241
Kurhaluk N. Supplementation with L-arginine and nitrates vs age and individual physiological reactivity. Nutr Rev 2023, nuad131.
Kurhaluk N. The Effectiveness of L-arginine in Clinical Conditions Associated with Hypoxia. Int J Mol Sci 2023;24:8205
Weng X, Chen H, Yu Q, Xu G, Meng Y, Yan X, McConell G, Lin W. Intermittent Hypoxia Exposure Can Prevent Reductions in Hemoglobin Concentration After Intense Exercise Training in Rats. Front Physiol 2021;12:627708.
Truzzi DR, Medeiros NM, Augusto O, Ford PC. Dinitrosyl Iron Complexes (DNICs). From Spontaneous Assembly to Biological Roles. Inorg Chem 2021;60:15835-15845.
Источники 59–64
Lewandowska H, Sadło J, Męczyńska S, Stępkowski TM, Wójciuk G, Kruszewski M. Formation of glutathionyl dinitrosyl iron complexes protects against iron genotoxicity. Dalton Trans 2015;44:12640- 12652.
Vanin AF, Borodulin RR, Mikoyan VD. Dinitrosyl iron complexes with natural thiol-containing ligands in aqueous solutions: Synthesis and some physico-chemical characteristics (A methodological review). Nitric Oxide 2017;66:1-9.
Soodaeva S, Klimanov I, Kubysheva N, Popova N, Batyrshin I. The State of the Nitric Oxide Cycle in Respiratory Tract Diseases. Oxid Med Cell Longev 2020;2020:4859260.
Zhao N, Xu X, Jiang Y, Gao J, Wang F, Xu X, Wen Z, Xie Y, Li J, Li R, Lv Q, Liu Q, Dai Q, Liu X, Xu G. Lipocalin-2 may produce damaging effect after cerebral ischemia by inducing astrocytes classical activation. J Neuroinflammation 2019;16:168.
Stachon T, Latta L, Seitz B, Szentmáry N. Hypoxic stress increases NF-κB and iNOS mRNA expression in normal, but not in keratoconus corneal fibroblasts. Graefes Arch Clin Exp Ophthalmol 2021;259:449-458.
Kosutova M, Pechanova O, Barta A, Franova S, Cebova M. Different adaptive NO-dependent Mechanisms in Normal and Hypertensive Conditions. Molecules 2019;24:1682.
Источники 65
Wischmann P, Kuhn V, Suvorava T, Muessig JM, Fischer JW, Isakson BE, Haberkorn SM, Flögel U, Schrader J, Jung C, Cortese-Krott MM, Heusch G, Kelm M. Anaemia is associated with severe RBC dysfunction and a reduced circulating NO pool: vascular and cardiac eNOS are crucial for the adaptation to anaemia. Basic Res Cardiol 2020;115:43.
Технология и практика
Практическая организация дозированных дыхательных процедур описана отдельно: принципы IHHT, чередование кислородных режимов и биофидбэк.