Примечание редакции. Это механистический обзор, а не клиническая инструкция или исследование эффективности аппарата OXYTERRA. Он объединяет данные о разных видах гипоксии, исследования на людях и животных. Описанные дозы не являются рекомендациями для самостоятельного применения. Ранняя онлайн-публикация вышла 20 октября 2023 года; окончательные выходные данные журнала — 2024, том 602, выпуск 21, страницы 5757–5783. Цитируемые работы Serebrovska и соавт. (2019) и Kushwah и соавт. (2016) впоследствии отозваны; соответствующие утверждения сохранены как исторический текст и отдельно помечены. Отзыв касается этих источников, не самого обзора.
Аннотация
Интервальную гипоксию (IH) часто связывают с патологическими состояниями, прежде всего с обструктивным апноэ сна. Однако её всё чаще применяют для улучшения здоровья и работоспособности, рассматривая как потенциально действенное немедикаментозное вмешательство при многих заболеваниях. Полезность или вред IH в значительной степени определяются интенсивностью, длительностью, числом и частотой гипоксических воздействий и конкретными ответами, которые они вызывают. Адаптация к гипоксии защищает от последующих гипоксических или ишемических повреждений, повышает клеточную устойчивость и улучшает функции, умственную и физическую работоспособность.
Клеточные и системные механизмы этих эффектов чрезвычайно сложны: нарушения отдельных компонентов способны переводить долговременную адаптацию в дезадаптацию и развитие патологии. Вместо подробного разбора отдельных хорошо изученных реакций авторы объединяют активируемые гипоксией механизмы в целостную картину адаптации организма к гипоксии, особенно IH, и показывают, как использовать возможную пользу, минимизируя риски.
Введение
Поддержание достаточного снабжения кислородом и распознавание снижения его парциального давления (PO₂) необходимы всем аэробным видам. Выраженная гипоксия окружающей среды (рисунок 1, таблица 1) может вызывать опасные острые состояния, например высотный отёк мозга, отёк лёгких и лёгочную гипертензию (Luks & Hackett, 2022). Тканевая гипоксия связана со множеством заболеваний (Semenza, 2012) и может способствовать их прогрессированию, как при раке (Schito & Semenza, 2016).
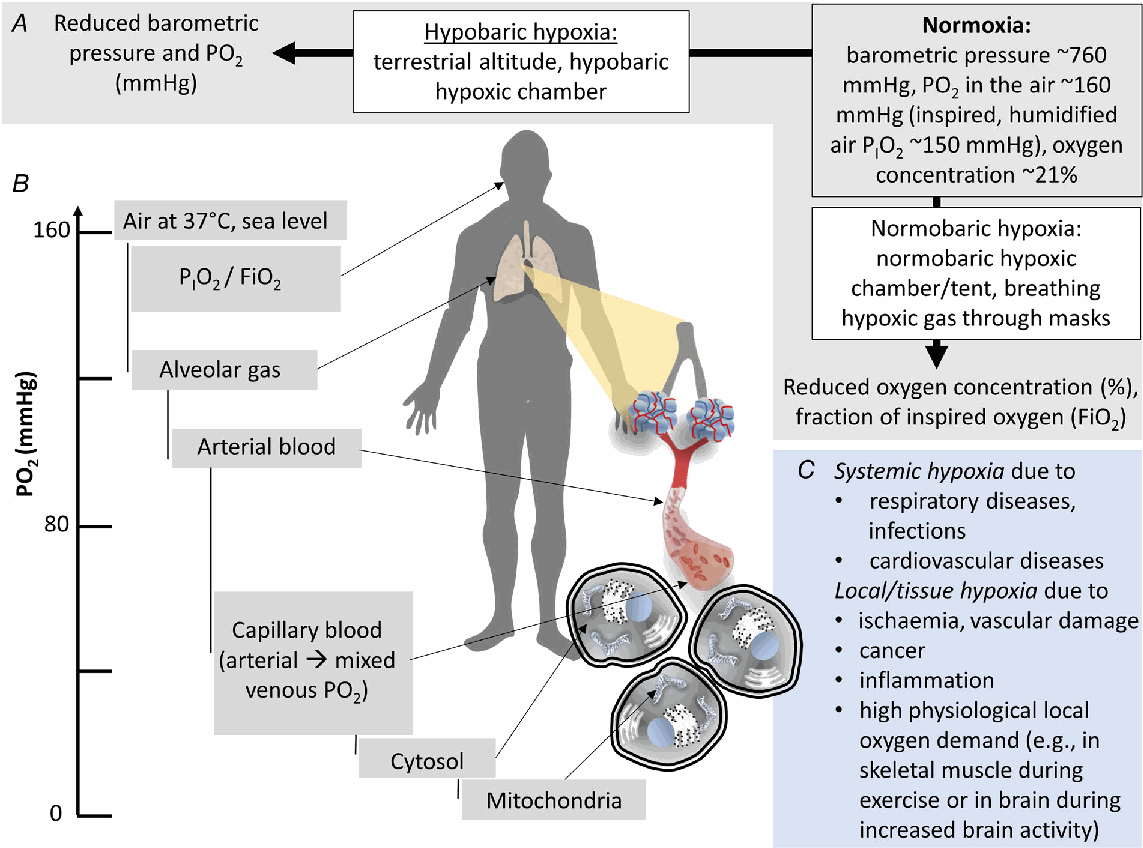
Таблица 1. Определения
Гипоксия
Снабжение кислородом не соответствует потребности вследствие низкого парциального давления вдыхаемого кислорода, низкой его концентрации в воздухе и/или недостаточной оксигенации тканей.
Гипоксемия
Парциальное давление кислорода артериальной крови ниже 60 мм рт. ст. (8 кПа) либо насыщение гемоглобина кислородом ниже 90%.
Гипероксия
Аномально повышенное напряжение кислорода в крови и тканях, обычно при дыхании смесями с высоким парциальным давлением кислорода.
Острая гипоксия
Начальная фаза воздействия с наиболее выраженными физиологическими и патологическими реакциями; продолжительность от минут до дней.
Хроническая гипоксия
Длительное непрерывное или интервальное воздействие после острой фазы; от дней до лет.
Функциональная гипоксия
Физические или интенсивные двигательно-когнитивные задачи относительно уменьшают снабжение кислородом скелетных мышц или мозга при резко возросшей потребности. Такая гипоксия после физиологических задач может быть важна для устойчивой адаптации, повышающей мышечную или мозговую работоспособность.
Интервальная гипоксия
Также циклическая или эпизодическая. Два основных типа имеют разные эффекты: высокочастотная, например при апноэ сна, преимущественно вызывает дезадаптацию; низкочастотная, например IHE/кондиционирование, преимущественно вызывает адаптацию. Результат зависит также от интенсивности, длительности и характера воздействия.
Непрерывная гипоксия
Непрерываемое воздействие на организм, например при пребывании на большой высоте.
Интервальное гипоксическое кондиционирование, острая IH и IHT
Несколько сеансов циклов умеренной гипоксии, обычно FiO₂ 9–15%, с дыханием обычным воздухом между ними. Преимущественно вызывает адаптивные физиологические и молекулярные реакции. Также называется IHE; термин «острая IH» чаще используется в работах о дыхательной пластичности или повреждении спинного мозга. IHT нередко, но не всегда, означает сочетание IH с упражнениями.
IHE/IHC и IHHE/IHHC
Типичные параметры протоколов
Типичные протоколы: гипоксия по 4–8 мин с FiO₂ 10–15%, чередующаяся с нормоксией по 2–5 мин (IHE: FiO₂ 21%) или гипероксией (IHHE: FiO₂ 30–35%); всего 35–40 мин за сеанс, 3–5 раз в неделю на протяжении 3–8 недель. IHHE также называют интервальным гипоксически-гипероксическим кондиционированием, IHHC.
Определения и численные диапазоны воспроизводят исходную таблицу авторов. Это не индивидуальные назначения или границы безопасного самостоятельного применения.
Несмотря на риски неконтролируемой гипоксии, новые исследования указывают на значительный потенциал дозированного изменения доступности кислорода для повышения работоспособности, регуляции обмена веществ и боли, воздействия на сердечно-сосудистые и метаболические нарушения, последствия повреждения спинного мозга, неврологические, психические и другие заболевания. Благоприятные эффекты контролируемой гипоксии, называемой гипоксическим кондиционированием, вызывают научный и коммерческий интерес, расширяя применение различных протоколов у здоровых людей и пациентов. Однако механистические основы пользы и возможных рисков изучены недостаточно.
Клеточные и системные ответы включают сосудистое и метаболическое ремоделирование, дыхательные и сердечно-сосудистые механизмы поддержания доставки кислорода. Они могут уменьшать гипоксическое повреждение и повышать устойчивость клеток и тканей, здоровье и работоспособность.
Исследования разных популяций с разными методами, протоколами, технологиями и терминологией сосредоточены на неодинаковых механизмах (Panza et al., 2023), поэтому понимание лежащих в основе факторов фрагментарно. Результаты критически зависят от протокола, индивидуальных ответов и уязвимости. Важны гипоксическая доза — интенсивность, длительность, частота и характер воздействия — сочетание с упражнениями или лекарствами, способ и время применения, температура, влажность, атмосферное давление и другие условия среды, физиологические особенности человека, включая пол, возраст и этническую принадлежность, заболевания в анамнезе и принимаемые препараты.
Циклическое воздействие и кондиционирование
Современные протоколы гипоксического кондиционирования часто используют повторные циклические воздействия умеренно сниженной доли кислорода во вдыхаемой смеси (FiO₂), чередующиеся с нормоксией или мягкой гипероксией, то есть интервальную гипоксию (IH). Интервальные гипоксические или гипоксически-гипероксические воздействия (IHE или IHHE) проводят несколько раз в неделю в течение нескольких недель (Burtscher et al., 2004, 2009; Glazachev et al., 2017). Им свойственны многократные, обычно резкие переходы от гипоксии к нормоксии либо гипероксии. Применяются и протоколы длительного непрерывного гипоксического кондиционирования.
Объединяя основные возможные механизмы благоприятных эффектов IH, авторы стремятся представить целостное объяснение действия гипоксического кондиционирования. Рассматриваются молекулярные и системные физиологические ответы, значение отдельных механизмов для разных эффектов. Главная тема — IH, но обсуждаются и эффекты непрерывной гипоксии, потенциально значимые для IH. Важный пробел — влияние гипоксической дозы на вклад разных адаптационных механизмов.
Доза определяет, вызывает ли гипоксия полезную адаптацию или дезадаптацию, как, например, при обструктивном апноэ сна (OSA). Чувствительность органов и физиологических функций различается: полезное для одной системы воздействие может оказаться неэффективным или опасным для другой. Обзор сосредоточен на благоприятных исходах, но одной из центральных задач исследований остаётся установление порогов дезадаптации. Имеющаяся литература даёт отдельные ориентиры, однако необходимы обширные систематические исследования. Подробная оценка результатов всех опубликованных протоколов выходит за рамки обзора; авторы обобщают механизмы, ссылаются на специализированные обзоры и приводят примеры.
Молекулярное восприятие кислорода и посредники гипоксических ответов
Многочисленные биохимические и молекулярные механизмы обеспечивают клеточное восприятие кислорода и запускают адаптивную транскрипцию (Baik & Jain, 2020; Lee et al., 2020), поддерживая необходимые кислородзависимые процессы, например митохондриальное дыхание и десатурацию жирных кислот. Нетранскрипционные ответы включают изменения липидного обмена, проницаемости ионных каналов и посттранскрипционных модификаций, например фосфорилирования белков (Burtscher, Pepe et al., 2023; Lee et al., 2020; Li et al., 2017), а также кислородзависимые ферментативные реакции NADPH-оксидаз (NOX), синтаз оксида азота (NOS), гемоксигеназ и α-кетоглутаратных диоксигеназ (Lee et al., 2020; Terraneo et al., 2017).
Различные сродство к кислороду и локализация обеспечивают ответы, зависящие от типа клеток и среды. α-Кетоглутаратные диоксигеназы регулируют количество РНК, деметилирование ДНК и гистонов (Batie et al., 2019; Chakraborty et al., 2019), стабильность гипоксия-индуцируемых транскрипционных факторов HIF (Wang et al., 1995).
Транскрипционные факторы HIF, Nrf2 и NF-κB
Эти три мощных регулятора опосредуют адаптацию и/или дезадаптацию. Активируемые HIF гены преимущественно повышают кислородтранспортную способность крови через эритропоэз, доставку кислорода через сосудистое ремоделирование и кислороднезависимое образование АТФ через транспорт глюкозы и гликолиз (Semenza, 2012). Nrf2 регулирует антиоксидантную защиту (Burtscher, Mallet et al., 2022). NF-κB — важный регулятор воспалительных ответов на гипоксию и другие стрессоры (Scholz et al., 2013).
Nrf2, NF-κB, специфический белок 1 и различные микроРНК и некодирующие РНК участвуют в транскрипционном контроле HIF (Taylor & Scholz, 2022). На посттрансляционном уровне HIF регулируется кислородзависимым гидроксилированием α-субъединиц α-кетоглутаратзависимыми диоксигеназами: пролил-4-гидроксилазами (PHD) и аспарагинилгидроксилазой FIH — фактором, ингибирующим HIF. При нормоксии гидроксилирование PHD и FIH запускает протеасомную деградацию α-субъединиц. Стабилизированные гипоксией α-субъединицы образуют гетеродимеры с β-субъединицами, управляющие обширной программой генов (рисунок 2).
Три известных подтипа HIF имеют разные α-субъединицы. Перекрывающаяся регуляция HIF-1 и HIF-2 контролирует ангиогенез, липидный обмен и иммунитет (Keith et al., 2011; Mole et al., 2009), но различия пространственно-временной экспрессии, кофакторов (Lendahl et al., 2009) и связывания с ДНК (Smythies et al., 2019) обеспечивают разные функции. HIF-1 регулирует переключение на гликолиз, HIF-2 — сосудистое ремоделирование и эритропоэз (Burtscher, Hohenauer et al., 2023). Функции HIF-3 изучены неполно; вероятно, он регулирует сигнализацию HIF-1 и HIF-2 (Lendahl et al., 2009).
Активность HIF зависит от типа клеток и носит преходящий характер: уменьшается даже при сохраняющейся гипоксии. IH может обеспечивать более длительную активацию, чем непрерывная гипоксия.
Дозозависимая стабилизация HIF-1α
Стабилизация HIF-1α зависит от дозы (Jiang et al., 1996; Li et al., 2022): умеренное снижение PO₂ сильнее инактивирует PHD, чем FIH, имеющий более высокое сродство к кислороду (Volkova et al., 2022). Повсеместно экспрессируемый HIF-1 преимущественно опосредует острые ответы; в эндотелиальных клетках его содержание достигает максимума примерно через 4 ч гипоксии (Jaśkiewicz et al., 2022). Более ограниченный определёнными клетками HIF-2 связан с хроническими ответами; после примерно 8 ч непрерывной гипоксии его эндотелиальное содержание выходит на плато на несколько часов (Holmquist-Mengelbier et al., 2006; Jaśkiewicz et al., 2022).
Дополняя HIF, Nrf2 регулирует гены антиоксидантных и противовоспалительных ферментов (рисунок 2; Burtscher, Mallet, Burtscher et al., 2021). Они синтезируют глутатион, образуют NADPH для поддержания восстановленного состояния антиоксидантов, нейтрализуют активные формы кислорода (ROS) посредством переноса электронов и расщепляют гем до противовоспалительного биливердина. Циклы гипоксии–нормоксии и гипоксии–гипероксии стимулируют супероксид: преимущественно через комплексы I и III митохондрий при гипоксии и NADPH-оксидазу при реоксигенации (Burtscher, Mallet et al., 2022). Производные супероксида освобождают Nrf2 от цитозольного супрессора Keap1. Nrf2 перемещается в ядро, связывается с коактиватором Maf и активирует свою генную программу.
NF-κB и воспалительные ответы
Гипоксия влияет и на NF-κB — регулятор генов воспаления, апоптоза и врождённого иммунитета (D’Ignazio & Rocha, 2016). В зависимости от степени активации его программа дополняет либо противодействует цитозащитным программам HIF и Nrf2. Клеточный стресс активирует киназы, фосфорилирующие репрессор IκB и направляющие его на деградацию. Освобождённый димер p65–p50 входит в ядро и активирует гены индуцибельной NOS, провоспалительных цитокинов и проапоптотических белков. Взаимодействие HIF и NF-κB (D’Ignazio et al., 2016) зависит от интенсивности и длительности гипоксии и может ослаблять (Amin et al., 2021) либо усиливать воспаление (Moulin et al., 2020).
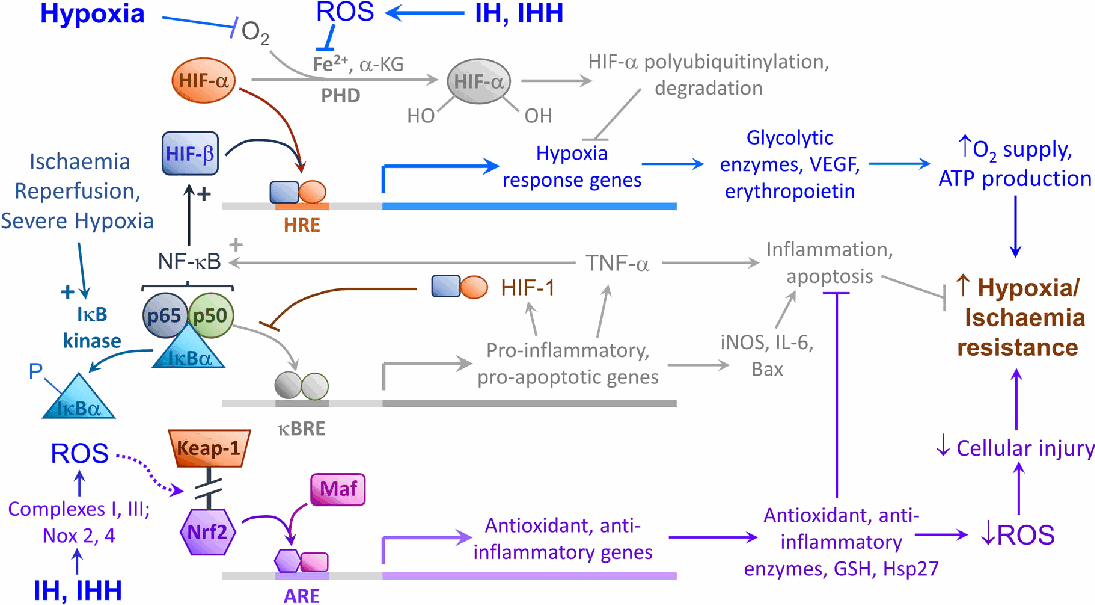
Сокращения рисунка 2: ARE — антиоксидантный элемент ответа; κBRE — элемент ответа κB; GSH — глутатион; HIF — гипоксия-индуцируемый фактор; HRE — гипоксический элемент ответа; Hsp27 — белок теплового шока 27; IH — интервальная гипоксия; IHH — интервальная гипоксия–гипероксия; IL-6 — интерлейкин 6; iNOS — индуцибельная синтаза NO; Keap-1 — kelch-подобный ECH-ассоциированный белок 1; α-KG — α-кетоглутарат; NF-κB — ядерный фактор κB; Nox — NAD(P)H-оксидаза; Nrf2 — фактор, связанный с эритроидным ядерным фактором 2; PHD — пролил-4-гидроксилазы; TNF-α — фактор некроза опухоли α; VEGF — сосудистый эндотелиальный фактор роста.
Взаимодействие транскрипционных факторов
На рисунке 2 показан вклад HIF, Nrf2 и NF-κB. Важны и другие транскрипционные факторы, например регулируемый HIF-1 опухолевый супрессор p53 (An et al., 1998), и сигнальные пути.
AMPK и mTOR
Нарушая окислительное образование АТФ, гипоксия угрожает АТФ-зависимым процессам. Пути AMP-активируемой протеинкиназы AMPK и мишени рапамицина mTOR совместно с HIF экономят клеточные затраты АТФ. К наиболее затратным процессам относятся синтез белка и поддержание электрохимических градиентов Na⁺ и K⁺ посредством Na⁺/K⁺-АТФаз. Гипоксия может активировать AMPK независимо от соотношения AMP/ATP — её основного активатора, возрастающего при несоответствии доставки АТФ потребности (Dengler, 2020). AMPK снижает затраты АТФ, стимулируя эндоцитоз и деградацию Na⁺/K⁺-АТФаз (Gusarova et al., 2009) и подавляя синтез белка через ингибирование mTOR, эукариотического фактора инициации 2α и фактора элонгации 2 (Liu et al., 2006).
Ответы на повреждение ДНК и неправильно свёрнутые белки
Выраженная тканевая гипоксия вызывает окислительное повреждение ДНК, изменяет хроматин и подавляет кислородзависимый синтез ДНК (Foskolou et al., 2017; Olcina et al., 2013). Распознавание повреждения запускает ответ с репарацией, управляемой киназами, родственными PI3K (Blackford & Jackson, 2017). Временная остановка клеточного цикла поддерживает восстановление и может повышать устойчивость к будущему повреждению. Чрезмерная активация в стрессированных клетках, однако, ведёт к постоянной остановке цикла — клеточному старению — либо апоптозу (Blackford & Jackson, 2017).
Ответы эндоплазматического ретикулума (Pueyo et al., 2000) и митохондрий (Shpilka & Haynes, 2018) на неправильно свёрнутые белки регулируют белковый гомеостаз и запускаются различными стрессорами, включая гипоксию (Walter & Ron, 2011). Они тесно координируются с ответом на повреждение ДНК и путями HIF, иммунной сигнализацией и PI3K/Akt/mTOR. Совместно эти механизмы регулируют окислительно-восстановительное состояние, аутофагию, белковый гомеостаз и метаболическое перепрограммирование (Bolland et al., 2021). У HIF, AMPK, mTOR и ответов на повреждённую ДНК и неправильно свёрнутые белки разные пороги гипоксической активации, что обеспечивает дозозависимые варианты реакций и адаптации.
Системное восприятие кислорода
Описанные молекулярные механизмы обеспечивают системное восприятие кислорода и непосредственные гипоксические ответы. Гипоксический вентиляционный ответ (HVR) человека и большинства млекопитающих повышает альвеолярную вентиляцию, компенсируя снижение PO₂ во вдыхаемом воздухе. Его инициируют хеморецепторы, прежде всего гломусные клетки каротидных телец (Iturriaga et al., 2021; Teppema & Dahan, 2010). Снижение артериального PO₂ и повышение лактата (Chang et al., 2015; Torres-Torrelo et al., 2021) активируют через эти клетки сенсорные нейроны нижних ганглиев языкоглоточного нерва.
Импульсы поступают по этому нерву к специализированным нейронам ядра одиночного пути (Forster & Smith, 2010), запуская острый вентиляционный хеморефлекс с участием симпатической системы (Iturriaga et al., 2021). При содействии лёгочной вазоконстрикции увеличиваются минутная вентиляция и вентиляционно-перфузионное отношение (Kemp et al., 2002; Pamenter & Powell, 2016).
Точный молекулярный сенсор кислорода неизвестен. Гипоксия закрывает кислородчувствительные калиевые каналы каротидных и аортальных гломусных клеток, вызывая деполяризацию, вход кальция и выделение дофамина, активирующего нейроны ствола мозга (Iturriaga et al., 2021). У мышей с выключенной субъединицей комплекса I Ndufs2 чувствительность каротидных телец оказалась зависимой от комплекса I и NADH-дегидрогеназы (Fernández-Agüera et al., 2015; Jiménez-Gómez et al., 2023). Для гипоксической чувствительности и HVR у мышей необходимы повышение HIF-2α и зависимая от него экспрессия Cox4i2 — гена нетипичной, специфичной для каротидного тельца субъединицы дыхательного комплекса IV (Moreno-Domínguez et al., 2020).
Эритропоэтин и дыхательный ответ
Гипоксия-индуцируемая экспрессия эритропоэтина в мозге регулирует HVR через взаимодействие со стволовыми хеморецепторами и каротидными тельцами (Soliz et al., 2005, 2009). Непосредственное участие центральных хеморецепторов в системных гипоксических ответах человека остаётся предметом дискуссии (Funk & Gourine, 2018; Gourine & Funk, 2017; SheikhBahaei, 2020; Teppema, 2018). Классически они чувствительны к pH и парциальному давлению CO₂ (PCO₂ — главному регулятору альвеолярной вентиляции), а не PO₂, и через вентиляцию контролируют артериальное PCO₂ (Guyenet et al., 2019).
Основные структуры — комплекс пре-Бётцингера, ретротрапециевидное ядро и большое ядро шва (Goridis & Brunet, 2010). Комплекс пре-Бётцингера продолговатого мозга генерирует дыхательный ритм, регулирует активность дыхательных мышц, вдох, давление и ЧСС (Menuet et al., 2020). Иннервирующие его нейроны ретротрапециевидного ядра (Bochorishvili et al., 2012) контролируют автоматизм дыхания и необходимы для активного выдоха (Guyenet et al., 2019). Серотонинергические нейроны ядер шва воздействуют на это ядро, модулируя дыхание (Mulkey et al., 2007).
Клеточные эффекты мягкой интервальной гипоксии
Гормезис и клеточная устойчивость
Гипоксическое кондиционирование стремится вызвать адаптацию к гипоксическому стрессу, повышающую устойчивость к последующему стрессу. Основа — гормезис: мягкий, потенциально вредный стрессор повышает устойчивость клеток и тканей (Esparza-Moltó et al., 2021; Ristow & Schmeisser, 2014), тогда как выраженная или длительная гипоксия наносит необратимый вред. Кондиционирование «тренирует» адаптивную гибкость стрессового ответа (Burtscher, Romani et al., 2022).
Митохондриальный и клеточный стрессовый ответ
Митохондриальные реакции и адаптации частично координируются HIF, регулятором биогенеза митохондрий PGC-1α, c-MYC, сиртуином 1 (SIRT1) и AMPK (Ham & Raju, 2017). HIF повышает экспрессию фактора теплового шока, координирующего активацию белков HSP (Baird et al., 2006), важных для перекрёстной адаптации и устойчивости к гипоксии и теплу (Gibson et al., 2017).
При острой гипоксии митохондрии повышают эффективность переноса электронов для сохранения образования АТФ: меняются субъединицы цитохром-c-оксидазы (Fukuda et al., 2007), её активность регулируется гипоксия-индуцируемым белком семейства HIGD1A (Hayashi et al., 2015). При длительной гипоксии окислительное фосфорилирование замедляется, отчасти из-за ингибирования комплекса I (Burtscher, Mallet et al., 2022), одновременно усиливаются гликолиз и использование глюкозы. Продолжительная непрерывная гипоксия может уменьшать митохондриальную массу через снижение биогенеза, усиление митофагии и изменение морфологии и динамики митохондрий (Burtscher, Hohenauer et al., 2023); для IH эти эффекты изучены недостаточно.
Аномальное слияние при гипоксии–реоксигенации может формировать кольцевидные митохондрии (Liu & Hajnoczky, 2011) или мегамитохондрии (Hao et al., 2023), потенциально участвующие соответственно в функциональном восстановлении или регуляции аутофагии.
Пластичность митохондрий — эффективность окислительного фосфорилирования, гибкость использования субстратов и альтернативных метаболических путей — делает их важными кандидатами на роль посредников полезных эффектов. Усиленные митофагия и антиоксидантные механизмы, вероятно, повышают клеточную устойчивость через контроль качества митохондрий. Однако данных о вызывающих эти эффекты дозах мало, особенно для IH.
Прооксидантно-антиоксидантный баланс
Длительная хроническая гипоксия вызывает повреждающий окислительный стресс; значимый источник ROS — разобщённые митохондрии (Smith et al., 2017). Другой источник — мембранная NOX4, непосредственно реагирующая на гипоксию (Diebold, Flugel et al., 2010; Kuroda et al., 2014; Radermacher et al., 2013; Terraneo et al., 2017). Рост прооксидантных факторов не обязательно означает повреждение: адаптационные редокс-каскады усиливают антиоксидантную способность и устойчивость клеток и организма (Roy et al., 2017; Sazontova & Arkhipenko, 2005).
При IH окислительный стресс преимущественно возникает во время реоксигенации и, подобно ишемии–реперфузии, отчасти связан с ксантиноксидазой: она превращает продукт распада АТФ гипоксантин в ксантин и урат, образуя супероксид пропорционально числу циклов (Nanduri et al., 2013). В отличие от длительной гипоксии, при мягкой IH циркулирующие окислительные маркеры сопоставимы с негипоксическими значениями; антиоксидантные пути предотвращают повреждение. Помимо Nrf2, защитное значение имеет серин/треониновая киназа Akt (протеинкиназа B) с нейропротекторным (Yan et al., 2016; Zhao et al., 2012) и кардиопротекторным действием (Milano et al., 2013).
Akt объединяет сигнальные пути миокарда (Sussman et al., 2011), вероятно, и большинства соматических клеток, и может быть ключевой для IH-защиты разных тканей.
Гипероксия и антиоксидантная защита
Гипероксия имеет сходный эффект: индукция сильной антиоксидантной защиты эффективно компенсирует усиленную продукцию ROS (Terraneo et al., 2017). Поэтому адаптивная антиоксидантная защита при IHHE может быть сильнее, чем при IHE, как показано у крыс (Gonchar & Mankovska, 2012).
Воспаление и иммунная функция
Ответы на гипоксию и воспаление тесно связаны. Гипоксия, частично через HIF, изменяет иммунные клетки и воспаление (Taylor & Scholz, 2022). Гидроксилазы PHD и FIH регулируют воспалительную сигнализацию через IL-1β и NF-κB (Scholz et al., 2013). В обратном направлении инфильтрация потребляющими кислород лейкоцитами и активация кислородпотребляющих ферментов вызывают гипоксию и активируют HIF в воспалённой среде (Cartwright & Colgan, 2023). HIF-1α необходим для индукции тренированного иммунитета моноцитов (Cheng et al., 2014), обеспечивающего неспецифическую или тренированную защиту.
Кислород критически важен для дифференцировки, активации и привлечения иммунных клеток (Eltzschig & Carmeliet, 2011; Zenewicz, 2017) и разрешения воспаления, например в ЖКТ (Cartwright & Colgan, 2023). IH-кондиционирование мобилизовало предшественники иммунных клеток и усиливало врождённый иммунитет у здоровых мужчин (Serebrovskaya et al., 2011).
Пролиферация, дифференцировка, миграция клеток и костная ткань
Гипоксия регулирует пролиферацию, дифференцировку, миграцию, выживание и апоптоз в нишах стволовых и иммунных клеток, а также в опухолевом микроокружении (Pulido-Escribano et al., 2022; Simon & Keith, 2008; Taylor & Colgan, 2017). HIF-2α повышает экспрессию циклина D1 и c-Myc, способствуя продвижению клеточного цикла и пролиферации (Gordan et al., 2007). HIF регулирует миграцию через гены α- и β-интегринов 1, 3 и 5 и матриксных металлопротеиназ (Friedl, 2004).
Гипоксическое кондиционирование потенциально изменяет пролиферацию и продолжительность жизни мезенхимальных стволовых клеток, предполагая применение IH в клеточной терапии (Lee et al., 2018; Pulido-Escribano et al., 2022). HIF регулирует ангиогенные, включая VEGF, и остеогенные факторы (Dirckx et al., 2018), гены ремоделирования костей, например остеопротегерин и эритропоэтин, и необходимые для дифференцировки остеобластов гликолитические ферменты (Lee et al., 2017; Semenza, 2001). Мягкая IH может вызывать адаптивное ремоделирование и дифференцировку мезенхимальных клеток в остеобласты (Camacho-Cardenosa et al., 2020; Guner et al., 2013). В клинических исследованиях уменьшались маркеры костной резорбции и стимулировалось костеобразование (Camacho-Cardenosa et al., 2022; Timon et al., 2022).
Нейропротекция
Из-за высокой потребности в кислороде и ограниченной антиоксидантной защиты (Sorce & Krause, 2009) нейроны особенно уязвимы к ROS (Benderro et al., 2012; Lee et al., 2005). Способность ишемического прекондиционирования повышать сопротивление мозга ишемическому повреждению и его восстановление хорошо известна (Dirnagl et al., 2009). IH может сходным образом улучшать структурную и функциональную устойчивость (Burtscher, Mallet, Burtscher et al., 2021; Rybnikova et al., 2022), снижая уязвимость к ROS через усиление антиоксидантов.
Возможен и усиленный нейрогенез, показанный у мышей (Li et al., 2023). Его может поддерживать HIF-1-зависимое метаболическое перепрограммирование: снижение окисления пирувата после индукции киназы пируватдегидрогеназы 1 (Kim et al., 2006; Papandreou et al., 2006) в сочетании с повышением гликолитических ферментов (Iyer et al., 1998).
Системные эффекты мягкой интервальной гипоксии
Вентиляционный ответ и дыхательная фасилитация
Артериальные хемосенсоры распознают гипоксию, активируют симпатическую систему и вентиляционный ответ. IH вызывает две формы вентиляционной пластичности: постепенное усиление HVR во время воздействия и длительную вентиляционную фасилитацию (vLTF) после него (Puri et al., 2021). vLTF запускается активацией серотонинергических нейронов ядер шва (Xing et al., 2014) и изменениями диафрагмальных мотонейронов (Nichols & Mitchell, 2021), усиливающими дыхательный моторный выход и минутную вентиляцию (Pamenter & Powell, 2016). У здоровых людей vLTF после острой интервальной гиперкапнической гипоксии частично зависит от периферического хеморефлекса через тоническую активацию каротидного тельца (Vermeulen et al., 2020).
Артериальное PCO₂, состояние бодрствования или сна и циркадный ритм изменяют HVR и vLTF (Mateika et al., 2018; Puri et al., 2020). В ранних исследованиях HVR менялся, но vLTF при бодрствовании отсутствовала, если PCO₂ не контролировали (Khodadadeh et al., 2006; Mateika et al., 2004; Morelli et al., 2004). При поддержании PCO₂ выше исходного уровня vLTF устойчиво выявлялась у здоровых людей (Gerst et al., 2011; Harris et al., 2006; Lee et al., 2009; Panza, Puri, Lin, & Mateika, 2022; Syed et al., 2013; Tester et al., 2014; Wadhwa et al., 2008).
Напротив, IH с интервальной гиперкапнией не вызывала vLTF во сне (Deacon et al., 2017), подчёркивая значение бодрствования и циркадных факторов.
Циркадные эффекты и сон
Реакции клеток, тканей и организмов зависят от времени относительно внешнего цикла свет–темнота и собственных циркадных ритмов (Manella et al., 2020; Sandbichler et al., 2018). Суточные изменения дыхательного ответа на IH (Kelly et al., 2020) могут участвовать во вредных последствиях гипоксических эпизодов при апноэ. Хроническая выраженная IH во сне — основной патофизиологический механизм апноэ — вызывает симпатическую гиперактивацию, метаболические и сердечно-сосудистые нарушения. Вместе с тем отдельные сообщения предполагают некоторую пользу умеренных форм апноэ (Lavie & Lavie, 2009).
У людей ≥65 лет умеренное апноэ с индексом 20–40 эпизодов/ч было связано с преимуществом выживаемости относительно национальных данных смертности, сопоставленных по возрасту, полу и этнической принадлежности (Lavie & Lavie, 2009); авторы приводят это как пример значения дозы.
При поддержании конечновыдохового CO₂ на 3 мм рт. ст. выше исходного IH из 12 двухминутных циклов при FiO₂ 8%, с двумя минутами нормоксии между ними, позволяла уменьшить постоянное положительное давление в дыхательных путях (CPAP) примерно на 5 см вод. ст. без потери воздушного потока у участников с OSA (El-Chami et al., 2017; Panza, Puri, Lin, Badr et al., 2022).
Наблюдательные связи и ограничения
Примечание редакции: приведённая наблюдательная связь при умеренном апноэ не доказывает его пользу и не означает, что апноэ следует вызывать или оставлять без лечения. Экспериментальные режимы из текста не являются рекомендациями по изменению CPAP.
При применении в бодрствовании IH улучшала функцию верхних дыхательных путей и приверженность CPAP у пациентов с OSA (Panza, Puri, Lin, Badr et al., 2022). Возможная польза мягкой IH может компенсироваться повышением коэффициента усиления петли дыхательного контроля и порога пробуждения, способным ухудшать апноэ (Alex et al., 2019; Panza et al., 2019).
Острая непрерывная гипоксия, например на высоте, может снижать общее время, эффективность и глубину сна и увеличивать пробуждения и периодическое дыхание у здоровых людей (Bloch et al., 2015), возможно через повышение вентиляционной чувствительности к CO₂ (Furian et al., 2022). Сопутствующие кардиореспираторные заболевания, например ХОБЛ, способны усиливать эти эффекты: при ночном пребывании на высоте учащаются центральные апноэ и гипопноэ (Latshang et al., 2019). Дальнейшие исследования должны определить возможность и режимы применения IH при апноэ и других нарушениях. Важны влияние циркадного ритма и состояния бодрствования на симпатические ответы на гипоксию и гиперкапнию.
Симпатическая нервная система и сердечно-сосудистые эффекты
Помимо вентиляционного ответа, острые сердечно-сосудистые реакции опосредуются активацией симпатической системы и/или подавлением парасимпатической (Meyer et al., 2019). Хотя оба хеморефлекса инициируются периферическими хеморецепторами, гипоксические пороги различны (Keir et al., 2019; Prasad et al., 2020). Вегетативные изменения повышают ЧСС, сердечный выброс, периферическое сопротивление и системное артериальное давление (Burtscher, Mallet et al., 2022; Mallet et al., 2021; Parati et al., 2015; Serebrovskaya et al., 2008), поддерживая доставку кислорода к мозгу и активным тканям (López-Barneo et al., 2016; Serebrovskaya et al., 2008).
Компенсаторная вазодилатация через высвобождение NO (Casey et al., 2010) при длительной гипоксии обычно уступает прессорным механизмам, повышающим давление (Veglio et al., 1999).
IH вызывает меньшую симпатическую активацию, чем непрерывная гипоксия (Chacaroun et al., 2016); кондиционирование, как предполагается, улучшает сердечно-сосудистые ответы. Подобно тренировкам на выносливость, оно может уменьшать симпатовозбуждающие эффекты (Miller et al., 2017), снижать систолическое давление (Chacaroun et al., 2016; Panza, Puri, Lin, Badr et al., 2022), ослаблять снижение вагусного влияния и чувствительность β-адренорецепторов (Burtscher et al., 2010). Это может объяснять уменьшение ЧСС в покое у кардиологических пациентов после IH (Glazachev et al., 2021) и быть связано с защитой от инфаркта и аритмий у собак (Mallet et al., 2006; Manukhina et al., 2013).
Клинические сердечно-сосудистые данные
Метаанализ исследований пациентов с сердечно-сосудистыми заболеваниями показал уменьшение ЧСС в покое со средней разницей −5,4 уд/мин, систолического давления −13,7 мм рт. ст. и диастолического −7,9 мм рт. ст. у пациентов с гипертензией (Glazachev et al., 2021). Результат подтвердило небольшое RCT с 16 пациентами на CPAP по поводу OSA и гипертензии: пять сеансов мягкой IH в неделю в течение трёх недель снизили систолическое давление примерно на 10 мм рт. ст., с 142,9 ± 8,6 до 132,0 ± 10,7; одна CPAP этого не дала (Panza, Puri, Lin, Badr et al., 2022).
NO важен для адаптационных механизмов (Manukhina et al., 2006) и, вероятно, участвует в снижении давления (Glazachev et al., 2021; Lyamina et al., 2011; Muangritdech et al., 2020). В пользу сердечно-сосудистых эффектов могут вносить вклад подготовка клеточных энергетических сенсоров, включая аденозин и AMPK, противовоспалительная сигнализация и усиление антиоксидантов (Almohanna & Wray, 2018; Bestavashvili et al., 2021).
Гипоксическое кондиционирование защищает эндотелий от ишемии–реперфузии. Три четырёхминутных цикла IH при FiO₂ 11–12% частично защищали эндотелиальную функцию плечевой артерии после последующего повреждения у молодых и пожилых людей (Jarrard et al., 2021; Stray-Gundersen et al., 2022). Подобно ишемическому прекондиционированию, небольшие выбросы ROS и NO могут активировать АТФ-чувствительные калиевые каналы и усиливать антиоксидантную защиту, подавляя агрегацию тромбоцитов и прикрепление лейкоцитов к эндотелию (Clanton & Klawitter, 2001; Jugdutt, 2002; Ryou et al., 2008). Поэтому подход представляется перспективным для защиты эндотелия человека от ишемически-реперфузионного повреждения.
Риск дезадаптации при высокой дозе
Несмотря на клинический потенциал, более высокие дозы IH могут вызывать вредную дезадаптацию с повышением давления и уменьшением биодоступности NO (Foster et al., 2009; Iturriaga, 2023; Stuckless et al., 2020).
Симпатическая система и мозговое вещество надпочечников образуют симпатоадреномедуллярную ось — важный компонент реакции на психический стресс. Обмен и сердечно-сосудистая функция быстро изменяются для ответа «бей или беги» (Godoy et al., 2018). Поэтому гипоксия влияет и на регуляцию психического стресса; см. разделы о гипоталамо-гипофизарно-надпочечниковой оси и расстройствах настроения.
Кровь и циркулирующие факторы
Гипоксия меняет состав крови, а доза определяет гематологическую адаптацию (Tobin et al., 2020, 2022). Выраженная гипоксия может ухудшать адгезию, распластывание и агрегацию тромбоцитов, ретракцию сгустка и прокоагулянтную активность на фоне усиления нейтрофильного воспаления (Etulain et al., 2012). Гипоксия-индуцированный эритропоэз может объяснять часть эффектов высотных тренировок (Rodriguez et al., 1999), в том числе защиту мозга, частично связанную с мозговой экспрессией эритропоэтина (Ehrenreich et al., 2022; Schuler et al., 2012).
Гипоксия среды меняет вязкость крови и поведение эритроцитов (Raberin et al., 2022). Одновременные лёгочная вазоконстрикция и вазодилатация в большинстве других сосудистых бассейнов перераспределяют кровь (Burtscher, Mallet et al., 2022). Объём плазмы уменьшается, а общая масса гемоглобина (Hb) увеличивается (Siebenmann et al., 2017). При острой гипоксии сокращения селезёнки повышают число циркулирующих эритроцитов и содержание Hb (Richardson et al., 2008), возможно защищая от тяжёлой гипоксии (Pernett et al., 2021).
Сначала снижение общего количества белка плазмы уменьшает её объём (Schlittler et al., 2021; Siebenmann et al., 2017), повышая гематокрит и концентрацию Hb. Затем зависимое от HIF-2 повышение эритропоэтина ускоряет созревание и пролиферацию эритроидных предшественников костного мозга (Haase, 2013). В течение нескольких дней увеличиваются ретикулоциты, затем масса Hb и кислородтранспортная способность (Schmidt, 2002).
Гемоглобин и объем плазмы
Рост массы Hb не компенсирует первоначальное уменьшение плазмы, поэтому общий объём крови после интервального высотного воздействия обычно снижается (Siebenmann et al., 2017). Напротив, кардиопротекторная IH у собак (Mallet et al., 2006) и IHHE, улучшавшая кардиореспираторную подготовленность пожилых кардиологических пациентов (Dudnik et al., 2018), не повышали ни гематокрит, ни массу Hb. Значит, сердечные эффекты возможны независимо от кислородтранспортной способности крови. Гематологическая адаптация может, однако, опосредовать другие эффекты, например повышение переносимости нагрузки (Burtscher et al., 2004).
Помимо гематологических изменений, возможными механизмами IH становятся высвобождение циркулирующих цитокинов (Serebrovska et al., 2022) и миокинов (van Meijel et al., 2023) и их сигнальные пути, сходные или перекрывающиеся с системной сигнализацией физических упражнений (Burtscher, Millet, Place et al., 2021).
Питательные вещества, метаболическая гибкость, аппетит и состав тела
Гипоксия регулирует аппетит, обмен и доступность и использование питательных веществ через циркулирующие гормоны, включая грелин и инсулин. Это описано при остром высотном воздействии (Aeberli et al., 2013; Spliethoff et al., 2013) и систематически рассмотрено для разных режимов гипоксии (Matu et al., 2018). В обратном направлении питание и нутриенты влияют на гипоксическую адаптацию и метаболические изменения (Lee et al., 2020). При длительной выраженной гипоксии истощение АТФ и снижение синтеза белка могут вызывать атрофию скелетных мышц (D’Hulst & Deldicque, 2017; Pesta et al., 2023).
Метаболическое ремоделирование поддерживает клеточную энергию через кислороднезависимые пути, например гликолиз. Гипоксия остро снижает сывороточную глюкозу, что делает вмешательства интересными для исследований ожирения и метаболических заболеваний (Kayser & Verges, 2013; Netzer et al., 2015). IH без упражнений может улучшать глюкозный гомеостаз при предиабете (Serebrovska et al., 2017). Упражнения в гипоксии представляются особенно подходящими для снижения метаболического риска (Haufe et al., 2008): изменения глюкозы и её транспорта (Soo et al., 2023), уменьшения массы тела молодых людей с ожирением (Kong et al., 2014), улучшения чувствительности к инсулину при диабете II типа (Mackenzie et al., 2011).
Окисление жиров и энергетический обмен
Гипоксия уменьшает окисление жирных кислот в скелетных мышцах. HIF-1 повышает киназу пируватдегидрогеназы 1, снижая доступность ацетилкоэнзима A и синтез жирных кислот (Taylor & Scholz, 2022). Компенсаторно усиливается восстановительный глутаминолиз (Metallo et al., 2011), сохраняя жирные кислоты для мембран. В мозге, почках и печени гипоксически кондиционированных мышей, напротив, возрастала зависимость окислительного фосфорилирования от жирных кислот (Midha et al., 2023). При хронической непрерывной гипоксии с FiO₂ 8% или 12% взрослые мыши меньше ели и теряли массу дозозависимо.
При FiO₂ 8% наблюдались острое снижение грелина плазмы после 3 ч, временное повышение лептина после 24 ч и грелина после одной недели. Первые 24 ч характеризовались также повышением инсулина и снижением глюкагона, способствующими поглощению глюкозы большинством тканей.
Гипоталамо-гипофизарно-надпочечниковая ось
Эта ось (HPA) контролирует выделение глюкокортикоидов, включая кортизол (de Kloet, 2013), дополняет симпатоадреномедуллярный ответ на психический стресс и участвует в гипоксической адаптации (Burtscher, Niedermeier et al., 2022). Нарушения HPA связаны с дезадаптацией, тревогой и депрессией. Гипоксия активирует её дозозависимо: длительная выраженная гипоксия вызывает устойчивую активацию с нарушением торможения по глюкокортикоидной обратной связи; мягкая и умеренная — физиологический двухфазный ответ (Rybnikova, Mironova et al., 2008).
В опытах на крысах умеренное повышение реактивности HPA к патогенному психоэмоциональному стрессу с одновременным увеличением глюкокортикоидных рецепторов гиппокампа оказалось важным механизмом стрессозащитного действия и потенциальной профилактики и коррекции стрессовых депрессивно-подобных и тревожных состояний (Rybnikova, Mironova, Pivina, Tulkova, Ordyan, Nalivaeva et al., 2007). Накапливаются данные о сильном, контекст-зависимом взаимодействии глюкокортикоидов, их рецепторов и HIF (Burtscher, Niedermeier et al., 2022; Rybnikova & Nalivaeva, 2021).
Настроение и связанные со стрессом расстройства
Психический и гипоксический стресс вызывают существенно перекрывающиеся ответы (Burtscher, Niedermeier et al., 2022), включая адреналин и норадреналин симпатоадреномедуллярной оси и глюкокортикоиды HPA. Поэтому гипоксия влияет на стрессовые реакции и заболевания; выраженная острая гипоксия может вызывать тревогу, панические атаки и симптомы депрессии. Напротив, кондиционирование демонстрировало антидепрессивные эффекты (Kushwah et al., 2016; Rybnikova, Mironova, Pivina, Tulkova, Ordyan, Vataeva et al., 2007; Rybnikova, Samoilov et al., 2008) и пользу при моделях посттравматического стрессового расстройства у животных (Ding et al., 2019; Manukhina et al., 2018; Manukhina et al., 2020).
Эти эффекты связывают с улучшением HPA и вегетативной регуляции, глюкокортикоидной обратной связи (Rybnikova & Samoilov, 2015), митохондриальных функций (Burtscher, Niedermeier et al., 2022) и уменьшением воспаления (Gangwar et al., 2019). И стрессовые психические расстройства, и гипоксия сопровождаются изменением обмена триптофана: образования серотонина и распада через кинурениновый путь (Burtscher, Niedermeier et al., 2022). Регуляция этого обмена доступностью кислорода может быть важным механизмом и будущей терапевтической мишенью.
Примечание редакции: цитируемая работа Kushwah и соавт. (2016) отозвана 7 февраля 2025 года. Её утверждения о нейропротекции и депрессивно-подобных состояниях у крыс не следует использовать как надёжное подтверждение эффекта.
Мозговой кровоток, когнитивные функции и профилактика деменции
В зависимости от выраженности гипоксия нарушает неврологические функции (Aboouf et al., 2023), может вызывать потерю сознания и необратимое повреждение мозга (Li et al., 2018). Умеренное снижение содержания кислорода в крови компенсируется усилением мозгового кровотока (Hoiland et al., 2016), тогда как снижение артериального PCO₂ уменьшает его (Carr et al., 2021). Поэтому доставка кислорода зависит от гипоксической гипервентиляции и последующей гипокапнии. Усиленный кровоток может компенсировать уменьшение кислорода (Hoiland et al., 2016), но выраженная гипоксия снижает кровоток (Chen, Qi et al., 2014; Willie et al., 2014) и повышает проницаемость гематоэнцефалического барьера (Bailey et al., 2022).
Функциональная гипоксия мозга (таблица 1) может возникать вследствие двигательно-когнитивных задач и стимулировать полезную адаптацию, повышая возможности мозга (Butt et al., 2021; Ehrenreich et al., 2023; Wakhloo et al., 2020). Предполагаемая защита цереброваскулярной функции совместно с влиянием на сердечно-сосудистый риск может иметь профилактическое значение при деменции (Manukhina et al., 2016). Возможные механизмы — микрососудистый ангиогенез и улучшение микроциркуляции — имеют узкое терапевтическое окно. Мягкая гипоксия с FiO₂ 15–21% менее 2 ч/день может быть недостаточной для ангиогенеза; FiO₂ ниже 10%, длительное или высокочастотное воздействие могут быть вредными (Guan, Gu et al., 2023; Guan, Liu et al., 2023).
От доклинических опытов к клиническим данным
Доклинические опыты на грызунах подготовили основу клинического изучения IHE и IHHE при неврологических заболеваниях. В модели болезни Альцгеймера у крыс, созданной введением токсичных фрагментов амилоида β в базальные крупноклеточные ядра, IH ослабляла снижение мозгового кровотока (Mashina et al., 2006), повышала системную продукцию NO и сохраняла память (Manukhina et al., 2008). У трансгенных мышей 21-дневная IH улучшала память и повышала эритропоэтин и BDNF коры мозга (Ryou et al., 2021).
У крыс с резкой отменой этанола после пяти недель богатой этанолом диеты четырёхнедельная IH почти устраняла нейроповеденческие признаки абстиненции, уменьшала ROS и переход митохондриальной проницаемости в большом мозге и мозжечке, резко снижала нейрональный апоптоз (Ju et al., 2012; Jung et al., 2008).
Клинические пилотные исследования описывают нейрокогнитивную пользу IHE и IHHE на ранних стадиях когнитивных нарушений. У людей 64–92 лет с лёгкой и умеренной деменцией добавление IHHE с чередованием FiO₂ 10–14% и 30–40% к мультимодальной тренировке улучшало Dementia Detect, тест рисования часов и функциональную переносимость нагрузки относительно одной тренировки (Bayer et al., 2017). В группе людей 51–74 лет с лёгкими когнитивными нарушениями программа IHHE с 12% и 33% FiO₂ улучшала общий результат MoCA (Serebrovska et al., 2019).
Наблюдения при когнитивных нарушениях
Среди пожилых людей 69 ± 3 лет с амнестическими лёгкими когнитивными нарушениями IHE с чередованием 5 мин гипоксии при 10% O₂ и 5 мин обычного воздуха усиливала гипоксическую церебральную вазодилатацию, повышала сатурацию мозговой ткани и улучшала MMSE и повторение цифровых рядов (Wang et al., 2020). Другая работа предполагает, что IHHE повышает определённые цитокины, запускающие клеточное адаптивное перепрограммирование и возможное воздействие на когнитивную дисфункцию и нейропатологию при прогрессировании болезни Альцгеймера (Serebrovska et al., 2022). По сообщению авторов обзора, во всех этих работах протоколы хорошо переносились и нежелательные явления не отмечались.
Боль и опиоиды
Гипоксия изменяет восприятие боли при важном участии HIF, воспалительных путей и их взаимодействия. HIF-1α увеличивает синтез NOX2 и NOX4 (Diebold, Petry et al., 2010; Yuan et al., 2011), участвующих в развитии нейропатической боли (Kallenborn-Gerhardt et al., 2012). Усиленная продукция ROS при IH (Lavie, 2005) может менять чувствительность: ROS связаны с проноцицептивной функцией NOX4 и активацией NF-κB-генов TNF-α, провоспалительных интерлейкинов и циклооксигеназы 2 (COX2) (Lavie, 2005; Zhang & An, 2007), способствуя сенситизации периферических ноцицепторов.
Примечание редакции: работа Serebrovska и соавт. (2019) отозвана 7 мая 2024 года. Её результаты MoCA сохранены как часть текста обзора, но не являются надёжным доказательством клинической пользы.
Напротив, мягкая IH может уменьшать системное воспаление и чувствительность к боли. Четыре пятиминутных воздействия с FiO₂ 10% ежедневно в течение 14 дней снижали сывороточные TNF-α и IL-4 и усиливали ответ интерферона γ у взрослых мужчин (Serebrovskaya et al., 2011). У мышей с дефицитом HIF-1α в первичных периферических сенсорных нейронах обнаружили двунаправленную регуляцию боли: острые ответы на холод, тепло, воспаление и ишемию усиливались, хроническая нейропатическая боль уменьшалась (Kanngiesser et al., 2014). Ингибирование HIF-1α также ослабляло боль и воспаление в мышиной модели хронической постишемической боли (Hsiao et al., 2016).
Болевые ответы и HIF-1α
Острые болевые ответы нейронов с дефицитом HIF-1α сопровождались усиленным кальциевым потоком и снижением электрического порога активации (Kanngiesser et al., 2014). Значит, HIF-1α ограничивает острые гиперчувствительные ответы, но может участвовать в хронической боли. Хроническая IH с чередованием 90-секундных воздействий 10% кислорода и нормоксии по 8 ч/день в течение нескольких недель снижала болевые ответы крыс (Wu et al., 2015). При этом повышалась экспрессия опиоидных рецепторов коры мозга, подчёркивая взаимодействие опиоидных рецепторов и HIF в восприятии боли и частично объясняя дискуссию об изменённой чувствительности к опиоидам при OSA (Brown et al., 2006; Lam et al., 2016).
Развитие устойчивости к тяжёлой гипоксии требует эндогенной опиоидной системы: антагонист рецепторов налоксон блокирует эффекты кондиционирования (Burtscher, Maglione et al., 2021). Ключевым посредником, вероятно, служит δ-опиоидный рецептор. Кондиционирование повышает эндогенный энкефалин и предпочитаемый им δ-рецептор (Gao et al., 2012; Ma et al., 2005), предположительно через HIF-1 (Schoos et al., 2019). Селективный антагонист налтриндол устранял защиту миокарда собак после 20-дневной IH (Estrada et al., 2016). δ-Опиоидная сигнализация защищает и от гипоксических повреждений мозга и неврологических заболеваний (Bissonnette et al., 2013; Burtscher et al., 2018; Chen, Li et al., 2014; Zhang et al., 2000), вероятно улучшая митохондриальные функции (Burtscher et al., 2018) и протеостаз (Burtscher, Syed et al., 2021).
Ограничения противоболевой гипотезы
Хотя мягкая IH может быть немедикаментозным средством изменения боли, HIF-1 способен способствовать хронической боли, а гипоксия взаимодействует с опиоидной системой и NF-κB. Необходимы исследования протоколов, сочетающих эффективность и безопасность для конкретных популяций.
Переносимость нагрузки, утомление и двигательная функция
Превосходство сочетания IH и упражнений над нормоксической тренировкой остаётся неясным (Lizamore & Hamlin, 2017). Без одновременных упражнений IHE (Lizamore & Hamlin, 2017) и IHHE (Behrendt et al., 2022) могут улучшать метаболический профиль и субмаксимальную переносимость нагрузки у неспортивных и малоподвижных людей. Эффекты при максимальной интенсивности и у спортсменов менее ясны (Bergeron et al., 2012; Millet et al., 2010). Вероятная основа — общие механизмы адаптации к гипоксии и упражнениям, повышающие переносимость, устойчивость к утомлению и двигательную функцию при подходящем сочетании дозы и программы.
Упражнения в гипоксии усиливают зависимость от анаэробной АТФ, накопление лактата и ионов водорода (Katayama et al., 2010). Мышцы утомляются в гипоксической и кислой среде; для поддержания механического выхода привлекаются дополнительные двигательные единицы. Это выявляется поверхностной электромиографией (EMG), измеряющей электрическую активность мышц (Fernández-Lázaro et al., 2020). EMG была выше при гипоксии относительно нормоксии при острых силовых (Scott et al., 2017) и выносливостных нагрузках (Amann et al., 2007).
Раннее утомление окислительных волокон I типа при нехватке кислорода, вероятно, требует дополнительных высокопороговых волокон II типа (Manimmanakorn et al., 2013). Это ускоряет утомление и повышает субъективную тяжесть (Amann et al., 2007), усиливает механическую нагрузку на волокна II типа и может вызывать последующую адаптацию и улучшение мышечной работоспособности (Manimmanakorn et al., 2013).
Анаэробная энергия и двигательная функция
Усиление анаэробного образования АТФ может повышать силу (Manimmanakorn et al., 2013) и прыжковую работоспособность (Coşkun et al., 2022). Активация AMPK усиливает транспорт глюкозы в скелетной мышце человека (Krook et al., 2004) и митохондриальное ремоделирование через PGC-1α (Spaulding & Yan, 2022). HIF-2 участвует в PGC-1α-зависимом переключении к более окислительным медленным волокнам (Rasbach et al., 2010). IH может особенно эффективно запускать эти процессы: повторные воздействия снижают HIF-1, что может быть необходимо для долговременной тренировочной адаптации (Lindholm & Rundqvist, 2016).
Улучшение переносимости также связывают с повышением вентиляции и сатурации при нагрузке, улучшением микрососудистой эндотелиальной функции, уменьшением симпатической активности, увеличением общего гемоглобина и диффузионной способности лёгких (Burtscher et al., 2004, 2009; Haider et al., 2009; Shatilo et al., 2008). Возможная польза относится к здоровым пожилым, пациентам с ишемической болезнью сердца, метаболическими нарушениями и ХОБЛ (Bestavashvili et al., 2021; Burtscher et al., 2004; Dudnik et al., 2018; Glazachev et al., 2017; Haider et al., 2009). Однако аэробные и анаэробные исходы различаются в зависимости от протокола и популяции (Burtscher et al., 2010).
Воздействие на гипоксические ответы рассматривается и при неврологических двигательных нарушениях: инсульте, болезни Паркинсона (Burtscher, Syed et al., 2021; Lestón Pinilla et al., 2021) и Хантингтона (Burtscher, Maglione et al., 2021). Предполагаемые механизмы — уменьшение воспаления, усиление антиоксидантов, эффективности митохондрий и нейрональной устойчивости (Burtscher, Mallet, Burtscher et al., 2021). IH также изучается как вспомогательное средство восстановления ходьбы после повреждения спинного мозга (Tan et al., 2020; Trumbower et al., 2012).
Например, после пяти дней острой IH с тренировкой ходьбы по поверхности скорость и выносливость ходьбы повысились соответственно на 15% и 36% у людей с хроническим частичным повреждением спинного мозга (Hayes et al., 2014). Точные механизмы не установлены; возможно, участвует BDNF-зависимое облегчение возбуждающей синаптической передачи к мотонейронам (Tan et al., 2020).
Заключение
Гипоксия среды вызывает сложные физиологические ответы и адаптацию. Помимо непосредственного риска повреждения, дезадаптация повышает вероятность неблагоприятных исходов и заболеваний. Успешная адаптация, напротив, может повышать устойчивость и здоровье. Возможные клинические применения показаны в разных областях: снижение давления при гипертензии (Panza, Puri, Lin, Badr et al., 2022), сохранение когнитивной функции пожилых (Bayer et al., 2017), содействие снижению массы тела при её избытке (Serebrovska et al., 2017). Особенно перспективны протоколы мягкой IH. Польза или вред зависят от дозы, индивидуальной предрасположенности, активности, лекарств и других факторов, ограничивающих сравнение исследований и перенос результатов на другие условия или популяции.
Разнообразие ответов привело к различным механистическим акцентам, экспериментальным подходам, дизайнам, протоколам и первичным исходам. Вместе с несогласованной терминологией (Panza et al., 2023) это затрудняет сравнение, оценку эффективности и безопасности. Для использования потенциала необходима оптимизация: согласование понимания и коммуникации между фундаментальными и клиническими направлениями, описание различий непрерывной гипоксии и IH и систематическое установление индивидуально оптимальных доз.
Особенно важно определить органо- и функционально-специфичные пороги, позволяющие получить нужный эффект без дезадаптации других органов. Например, выраженная IH с 90-секундными циклами 10% и 21% кислорода по 8 ч/день несколько недель уменьшала боль у крыс (Wu et al., 2015), но сходные протоколы вызывают у грызунов вредную симпатическую активацию и сердечно-сосудистое ремоделирование (Navarrete-Opazo & Mitchell, 2014).
Направления дальнейшего изучения
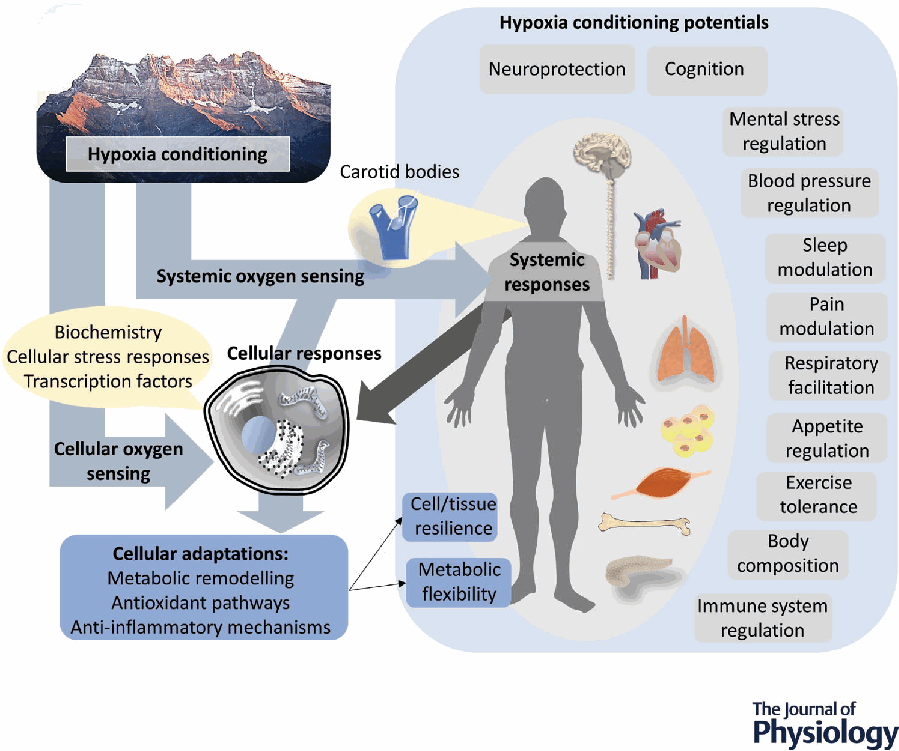
Авторы надеются, что обобщение механизмов (рисунок 3) поможет дальнейшему прогрессу. Для понимания пользы и риска нужны согласованная терминология и систематическая оценка разных применений с учётом изучаемых состояний и популяций. Остаются практические вопросы: как долго сохраняются эффекты после завершения программы? Можно ли восстановить их сокращённой программой? Влияют ли лекарства или добавки, например β-адреноблокаторы и антиоксиданты, как показано для кардиопротекции (Mallet et al., 2006) и церебропротекции (Jung et al., 2008) у животных? Какие протоколы наиболее эффективны в профилактике, реабилитации и повышении работоспособности, включая сравнение IHE и IHHE?
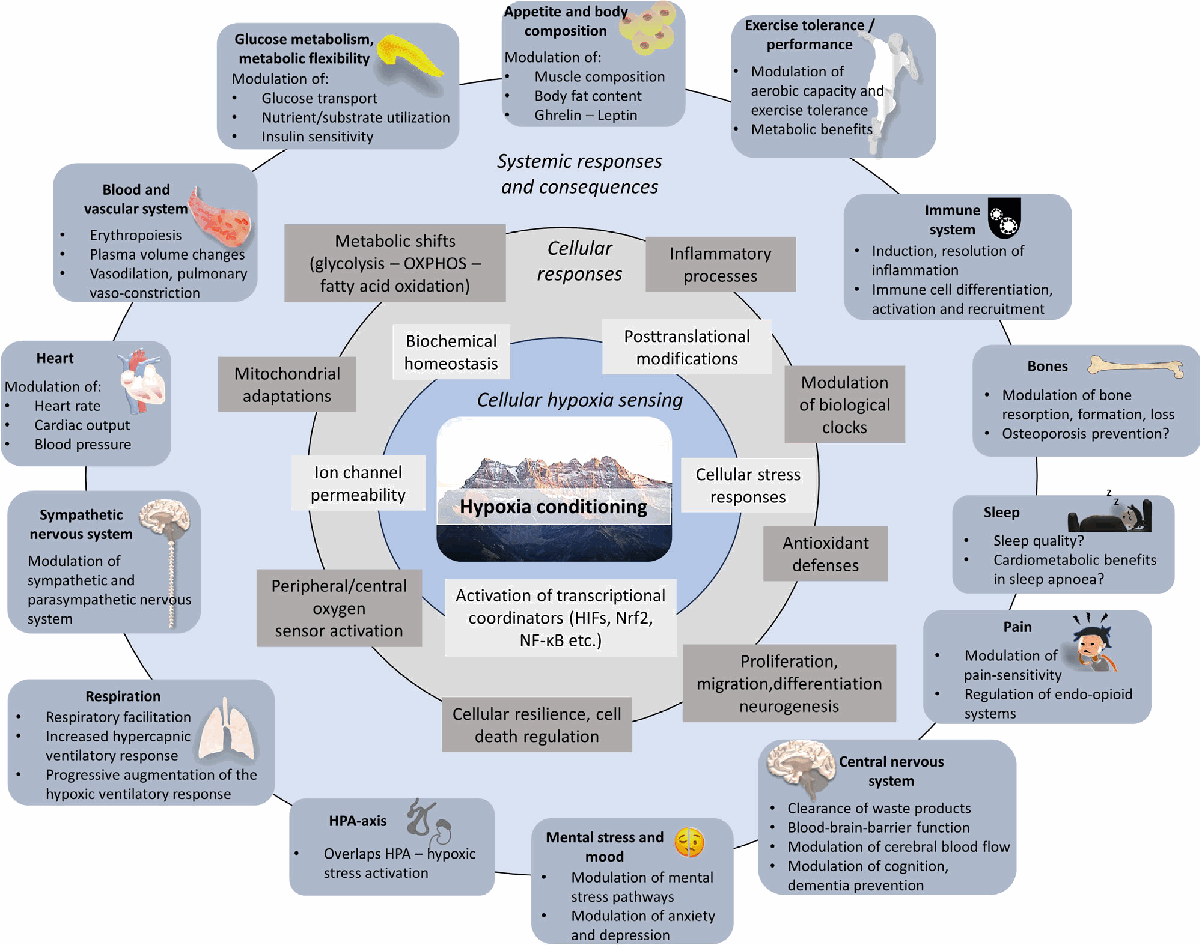
HIF — гипоксия-индуцируемый фактор; HPA — гипоталамо-гипофизарно-надпочечниковая ось; NF-κB — ядерный фактор κB; Nrf2 — фактор, связанный с эритроидным ядерным фактором 2. Схема показывает предполагаемые взаимосвязи, а не гарантированные клинические эффекты.
Сведения о публикации
Конфликт интересов: Авторы заявляют об отсутствии конкурирующих интересов.
Вклад авторов: J.B. и T.C. разработали концепцию; J.B. подготовил первоначальный текст. Все авторы участвовали в написании или критическом пересмотре важных интеллектуальных положений. J.B., G.P. и R.T.M. координировали окончательную редакцию, объединяя вклад авторов. Все прочитали и одобрили итоговую версию и согласились отвечать за точность и целостность работы, рассмотрение и разрешение соответствующих вопросов. Все указанные лица отвечают критериям авторства, и все отвечающие этим критериям включены. G. Panza и R.T. Mallet внесли равный вклад.
Финансирование: A.C.-C.: Министерство науки и инноваций Испании, FJC2020-043385-I; E.A.R.: Российский научный фонд, 22-25-00781; H.E.: ERC Advanced Grant по программе Horizon Europe, BREPOCI, 101054369, и Max Planck Förderstiftung; C.S.: Austrian Science Fund, FWF W1206; M.S.: Министерство университетов и исследований Италии, 2022E7FZEJ, проект JANUS — «Двойственная роль гипоксии в здоровье и болезни».
Благодарности: Авторы благодарят Roland Wenger за критическую проверку рукописи и ценные предложения.
Ключевые слова: Сердечно-сосудистые заболевания, клеточные стрессовые ответы, интервальное гипоксическое кондиционирование, митохондрии, неврологические нарушения, восприятие кислорода.
История и дополнительные материалы: Получено 29 июля 2023 года; принято после пересмотра 11 октября; впервые опубликовано онлайн 20 октября 2023 года. Редакторы: Harold Schultz и Mike Stembridge. История рецензирования доступна у издателя в разделе Supporting Information. Оригинальный PDF ниже — предоставленная ранняя онлайн-версия с обложкой ResearchGate, а не заново созданный PDF выпуска 2024 года.
Литература
Источники 1–4
Aboouf, M. A., Thiersch, M., Soliz, J., Gassmann, M., & Schneider Gasser, E. M. (2023). The brain at high altitude: From molecular signaling to cognitive performance. International Journal of Molecular Sciences, 24(12), 10179.
Aeberli, I., Erb, A., Spliethoff, K., Meier, D., Götze, O., Frühauf, H., Fox, M., Finlayson, G. S., Gassmann, M., Berneis, K., Maggiorini, M., Langhans, W., & Lutz, T. A. (2013). Disturbed eating at high altitude: Influence of food preferences, acute mountain sickness and satiation hormones. European Journal of Nutrition, 52(2), 625–635.
Alex, R. M., Panza, G. S., Hakim, H., Badr, M. S., Edwards, B. A., Sands, S. A., & Mateika, J. H. (2019). Exposure to mild intermittent hypoxia increases loop gain and the arousal threshold in participants with obstructive sleep apnoea. The Journal of Physiology, 597(14), 3697–3711.
Almohanna, A. M., & Wray, S. (2018). Hypoxic conditioning in blood vessels and smooth muscle tissues: Effects on function, mechanisms, and unknowns. American Journal of Physiology. Heart and Circulatory Physiology, 315(4), H756–H770.
Источники 5–8
Amann, M., Romer, L. M., Subudhi, A. W., Pegelow, D. F., & Dempsey, J. A. (2007). Severity of arterial hypoxaemia affects the relative contributions of peripheral muscle fatigue to exercise performance in healthy humans. The Journal of Physiology, 581(1), 389–403.
Amin, N., Chen, S., Ren, Q., Tan, X., Botchway, B. O. A., Hu, Z., Chen, F., Ye, S., Du, X., Chen, Z., & Fang, M. (2021). Hypoxia inducible factor-1α attenuates ischemic brain damage by modulating inflammatory response and glial activity. Cells, 10(6), 1359.
An, W. G., Kanekal, M., Simon, M. C., Maltepe, E., Blagosklonny, M. V., & Neckers, L. M. (1998). Stabilization of wild-type p53 by hypoxia-inducible factor 1alpha. Nature, 392(6674), 405–408.
Baik, A. H., & Jain, I. H. (2020). Turning the oxygen dial: Balancing the highs and lows. Trends in Cell Biology, 30(7), 516–536.
Источники 9–13
Bailey, D. M., Bain, A. R., Hoiland, R. L., Barak, O. F., Drvis, I., Hirtz, C., Lehmann, S., Marchi, N., Janigro, D., Macleod, D. B., Ainslie, P. N., & Dujic, Z. (2022). Hypoxemia increases blood-brain barrier permeability during extreme apnea in humans. Journal of Cerebral Blood Flow and Metabolism, 42(6), 1120–1135.
Baird, N. A., Turnbull, D. W., & Johnson, E. A. (2006). Induction of the heat shock pathway during hypoxia requires regulation of heat shock factor by hypoxia-inducible factor-1. The Journal of Biological Chemistry, 281(50), 38675–38681.
Batie, M., Frost, J., Frost, M., Wilson, J. W., Schofield, P., & Rocha, S. (2019). Hypoxia induces rapid changes to histone methylation and reprograms chromatin. Science, 363(6432), 1222–1226.
Bayer, U., Likar, R., Pinter, G., Stettner, H., Demschar, S., Trummer, B., Neuwersch, S., Glazachev, O., & Burtscher, M. (2017). Intermittent hypoxic-hyperoxic training on cognitive performance in geriatric patients. Alzheimer’s & Dementia, 3, 114–122.
Behrendt, T., Bielitzki, R., Behrens, M., Herold, F., & Schega, L. (2022). Effects of intermittent hypoxia-hyperoxia on performance- and health-related outcomes in humans: A systematic review. Sports Medicine Open, 8(1), 70.
Источники 14–17
Benderro, G. F., Sun, X., Kuang, Y., & Lamanna, J. C. (2012). Decreased VEGF expression and microvascular density, but increased HIF-1 and 2alpha accumulation and EPO expression in chronic moderate hyperoxia in the mouse brain. Brain Research, 1471, 46–55.
Bergeron, M.f, Bahr, R., Bärtsch, P., Bourdon, L., Calbet, J., Carlsen, K.h, Castagna, O., González-Alonso, J., Lundby, C., Maughan, R.j, Millet, G., Mountjoy, M., Racinais, S., Rasmussen, P., Subudhi, A.w, Young, A.j, Soligard, T., & Engebretsen, L. (2012). International Olympic Committee consensus statement on thermoregulatory and altitude challenges for high-level athletes. British Journal of Sports Medicine, 46(11), 770–779.
Bestavashvili, A., Glazachev, O., Bestavashvili, A., Ines, D., Suvorov, A. Y., Vorontsov, N., Tuter, D., Gognieva, D., Yong, Z., & Pavlov, C. (2021). The effects of intermittent hypoxic–hyperoxic exposures on lipid profile and inflammation in patients with metabolic syndrome. Frontiers in Cardiovascular Medicine, 8, 700826.
Bissonnette, S., Vaillancourt, M., Hébert, S. S., Drolet, G., & Samadi, P. (2013). Striatal pre-enkephalin overexpression improves Huntington’s disease symptoms in the R6/2 mouse model of Huntington’s disease. PLoS ONE, 8(9), e75099.
Источники 18–22
Blackford, A. N., & Jackson, S. P. (2017). ATM, ATR, and DNA-PK: The trinity at the heart of the DNA damage response. Molecular Cell, 66(6), 801–817.
Bloch, K. E., Buenzli, J. C., Latshang, T. D., & Ulrich, S. (2015). Sleep at high altitude: Guesses and facts. Journal of Applied Physiology, 119(12), 1466–1480.
Bochorishvili, G., Stornetta, R. L., Coates, M. B., & Guyenet, P. G. (2012). Pre-Bötzinger complex receives glutamatergic innervation from galaninergic and other retrotrapezoid nucleus neurons. Journal of Comparative Neurology, 520(5), 1047–1061.
Bolland, H., Ma, T. S., Ramlee, S., Ramadan, K., & Hammond, E. M. (2021). Links between the unfolded protein response and the DNA damage response in hypoxia: A systematic review. Biochemical Society Transactions, 49(3), 1251–1263.
Brown, K. A., Laferrière, A., Lakheeram, I., & Moss, I. R. (2006). Recurrent hypoxemia in children is associated with increased analgesic sensitivity to opiates. Anesthesiology, 105(4), 665–669.
Источники 23–27
Burtscher, J., Bean, C., Zangrandi, L., Kmiec, I., Agostinho, A., Scorrano, L., Gnaiger, E., & Schwarzer, C. (2018). Proenkephalin derived peptides are involved in the modulation of mitochondrial respiratory control during epileptogenesis. Frontiers in Molecular Neuroscience, 11, 351.
Burtscher, J., Hohenauer, E., Burtscher, M., Millet, G. P., & Egg, M. (2023). Environmental and behavioral regulation of HIF-mitochondria crosstalk. Free Radical Biology & Medicine, 206, 63–73.
Burtscher, J., Maglione, V., Di Pardo, A., Millet, G. P., Schwarzer, C., & Zangrandi, L. (2021). A rationale for hypoxic and chemical conditioning in Huntington’s disease. International Journal of Molecular Sciences, 22(2), 582.
Burtscher, J., Mallet, R. T., Burtscher, M., & Millet, G. P. (2021). Hypoxia and brain aging: Neurodegeneration or neuroprotection? Ageing Research Reviews, 68, 101343.
Burtscher, J., Mallet, R. T., Pialoux, V., Millet, G. P., & Burtscher, M. (2022). Adaptive responses to hypoxia and/or hyperoxia in humans. Antioxidants & Redox Signaling, 37(13–15), 887–912,
Источники 28–32
Burtscher, J., Millet, G. P., Place, N., Kayser, B., & Zanou, N. (2021). The muscle-brain axis and neurodegenerative diseases: The key role of mitochondria in exercise-induced neuroprotection. International Journal of Molecular Sciences, 22(12), 6479.
Burtscher, J., Niedermeier, M., Hüfner, K., Van Den Burg, E., Kopp, M., Stoop, R., Burtscher, M., Gatterer, H., & Millet, G. P. (2022). The interplay of hypoxic and mental stress: Implications for anxiety and depressive disorders. Neuroscience and Biobehavioral Reviews, 138, 104718.
Burtscher, J., Pepe, G., Maharjan, N., Riguet, N., Di Pardo, A., Maglione, V., & Millet, G. P. (2023). Sphingolipids and impaired hypoxic stress responses in Huntington disease. Progress in Lipid Research, 90, 101224.
Burtscher, J., Romani, M., Bernardo, G., Popa, T., Ziviani, E., Hummel, F. C., Sorrentino, V., & Millet, G. P. (2022). Boosting mitochondrial health to counteract neurodegeneration. Progress in Neurobiology, 215, 102289.
Burtscher, J., Syed, M. M. K., Lashuel, H. A., & Millet, G. P. (2021). Hypoxia conditioning as a promising therapeutic target in Parkinson’s Disease? Movement Disorders, 36(4), 857–861.
Источники 33–36
Burtscher, M., Gatterer, H., Szubski, C., Pierantozzi, E., & Faulhaber, M. (2010). Effects of interval hypoxia on exercise tolerance: Special focus on patients with CAD or COPD. Sleep and Breathing, 14(3), 209–220.
Burtscher, M., Haider, T., Domej, W., Linser, T., Gatterer, H., Faulhaber, M., Pocecco, E., Ehrenburg, I., Tkatchuk, E., Koch, R., & Bernardi, L. (2009). Intermittent hypoxia increases exercise tolerance in patients at risk for or with mild COPD. Respiratory Physiology & Neurobiology, 165(1), 97–103.
Burtscher, M., Pachinger, O., Ehrenbourg, I., Mitterbauer, G., Faulhaber, M., Pühringer, R., & Tkatchouk, E. (2004). Intermittent hypoxia increases exercise tolerance in elderly men with and without coronary artery disease. International Journal of Cardiology, 96(2), 247–254.
Butt, U. J., Steixner-Kumar, A. A., Depp, C., Sun, T., Hassouna, I., Wüstefeld, L., Arinrad, S., Zillmann, M. R., Schopf, N., Fernandez Garcia-Agudo, L., Mohrmann, L., Bode, U., Ronnenberg, A., Hindermann, M., Goebbels, S., Bonn, S., Katschinski, D. M., Miskowiak, K. W., Nave, K.-A., & Ehrenreich, H. (2021). Hippocampal neurons respond to brain activity with functional hypoxia. Molecular Psychiatry, 26(6), 1790–1807.
Источники 37–41
Camacho-Cardenosa, A., Camacho-Cardenosa, M., Martínez-Guardado, I., Leal, A., Andrada, J. M. V., & Timón, R. (2022). Resistance circuit training combined with hypoxia stimulates bone system of older adults: A randomized trial. Experimental Gerontology, 169, 111983.
Camacho-Cardenosa, M., Quesada-Gómez, J. M., Camacho-Cardenosa, A., Leal, A., Dorado, G., Torrecillas-Baena, B., & Casado-Díaz, A. (2020). Effects of normobaric cyclic hypoxia exposure on mesenchymal stem-cell differentiation–pilot study on bone parameters in elderly. World Journal of Stem Cells, 12(12), 1667–1690.
Carr, J. M. J. R., Caldwell, H. G., & Ainslie, P. N. (2021). Cerebral blood flow, cerebrovascular reactivity and their influence on ventilatory sensitivity. Experimental Physiology, 106(7), 1425–1448.
Cartwright, I. M., & Colgan, S. P. (2023). The hypoxic tissue microenvironment as a driver of mucosal inflammatory resolution. Frontiers in Immunology, 14, 1124774.
Casey, D. P., Madery, B. D., Curry, T. B., Eisenach, J. H., Wilkins, B. W., & Joyner, M. J. (2010). Nitric oxide contributes to the augmented vasodilatation during hypoxic exercise. The Journal of Physiology, 588(2), 373–385.
Источники 42–45
Chacaroun, S., Borowik, A., Morrison, S. A., Baillieul, S., Flore, P., Doutreleau, S., & Verges, S. (2016). Physiological responses to two hypoxic conditioning strategies in healthy subjects. Frontiers in Physiology, 7, 675.
Chakraborty, A. A., Laukka, T., Myllykoski, M., Ringel, A. E., Booker, M. A., Tolstorukov, M. Y., Meng, Y. J., Meier, S. R., Jennings, R. B., Creech, A. L., Herbert, Z. T., Mcbrayer, S. K., Olenchock, B. A., Jaffe, J. D., Haigis, M. C., Beroukhim, R., Signoretti, S., Koivunen, P., & Kaelin, W. G. (2019). Histone demethylase KDM6A directly senses oxygen to control chromatin and cell fate. Science, 363(6432), 1217–1222.
Chang, A. J., Ortega, F. E., Riegler, J., Madison, D. V., & Krasnow, M. A. (2015). Oxygen regulation of breathing through an olfactory receptor activated by lactate. Nature, 527(7577), 240–244.
Chen, F., Qi, Z., Luo, Y., Hinchliffe, T., Ding, G., Xia, Y., & Ji, X. (2014). Non-pharmaceutical therapies for stroke: Mechanisms and clinical implications. Progress in Neurobiology, 115, 246–269.
Источники 46–48
Chen, T., Li, J., Chao, D., Sandhu, H. K., Liao, X., Zhao, J., Wen, G., & Xia, Y. (2014). δ-Opioid receptor activation reduces α-synuclein overexpression and oligomer formation induced by MPP+ and/or hypoxia. Experimental Neurology, 255, 127–136.
Cheng, S.-C., Quintin, J., Cramer, R. A., Shepardson, K. M., Saeed, S., Kumar, V., Giamarellos-Bourboulis, E. J., Martens, J. H. A., Rao, N. A., Aghajanirefah, A., Manjeri, G. R., Li, Y., Ifrim, D. C., Arts, R. J. W., Van Der Veer, B. M. J. W., Deen, P. M. T., Logie, C., O’neill, L. A., Willems, P., Van De Veerdonk, F. L., Van Der Meer, J. W. M., Ng, A., Joosten, L. A. B., Wijmenga, C., Stunnenberg, H. G., Xavier, R. J., & Netea, M. G. (2014). mTOR-and HIF-1α–mediated aerobic glycolysis as metabolic basis for trained immunity. Science, 345(6204), 1250684.
Clanton, T. L., & Klawitter, P. F. (2001). Invited review: Adaptive responses of skeletal muscle to intermittent hypoxia: the known and the unknown. Journal of Applied Physiology, 90(6), 2476–2487.
Источники 49–55
Coşkun, B., Aras, D., Akalan, C., Kocak, S., & Hamlin, M. J. (2022). Plyometric Training in normobaric hypoxia improves jump performance. International Journal of Sports Medicine, 43, 519–525.
D’hulst, G., & Deldicque, L. (2017). Human skeletal muscle wasting in hypoxia: A matter of hypoxic dose? Journal of Applied Physiology, 122(2), 406–408.
D’ignazio, L., Bandarra, D., & Rocha, S. (2016). NF-κ B and HIF crosstalk in immune responses. FEBS Journal, 283(3), 413–424.
D’Ignazio, L., & Rocha, S. (2016). Hypoxia Induced NF-κ B. Cells, 5, 10.
De Kloet, E. R. (2013). Functional profile of the binary brain corticosteroid receptor system: Mediating, multitasking, coordinating, integrating. European Journal of Pharmacology, 719(1–3), 53–62.
Deacon, N. L., Mcevoy, R. D., Stadler, D. L., & Catcheside, P. G. (2017). Intermittent hypercapnic hypoxia during sleep does not induce ventilatory long-term facilitation in healthy males. Journal of Applied Physiology, 123(3), 534–543.
Dengler, F. (2020). Activation of AMPK under hypoxia: Many roads leading to Rome. International Journal of Molecular Sciences, 21(7), 2428.
Источники 56–59
Diebold, I., Flugel, D., Becht, S., Belaiba, R. S., Bonello, S., Hess, J., Kietzmann, T., & Gorlach, A. (2010). The hypoxia-inducible factor-2alpha is stabilized by oxidative stress involving NOX4. Antioxidants & Redox Signaling, 13, 425–436.
Diebold, I., Petry, A., Hess, J., & Görlach, A. (2010). The NADPH oxidase subunit NOX4 is a new target gene of the hypoxia-inducible factor-1. Molecular Biology of the Cell, 21(12), 2087–2096.
Ding, F.-S., Cheng, X., Zhao, T., Zhao, Y.-Q., Zhang, G.-B., Wu, H.-T., Zhu, L.-L., & Wu, K.-W. (2019). [Intermittent hypoxic preconditioning relieves fear and anxiety behavior in post-traumatic stress model mice]. Sheng Li Xue Bao [Acta Physiologica Sinica], 71, 537–546.
Dirckx, N., Tower, R. J., Mercken, E. M., Vangoitsenhoven, R., Moreau-Triby, C., Breugelmans, T., Nefyodova, E., Cardoen, R., Mathieu, C., Van Der Schueren, B., Confavreux, C. B., Clemens, T. L., & Maes, C. (2018). Vhl deletion in osteoblasts boosts cellular glycolysis and improves global glucose metabolism. Journal of Clinical Investigation, 128(3), 1087–1105.
Источники 60–64
Dirnagl, U., Becker, K., & Meisel, A. (2009). Preconditioning and tolerance against cerebral ischaemia: From experimental strategies to clinical use. The Lancet Neurology, 8(4), 398–412.
Dudnik, E., Zagaynaya, E., Glazachev, O. S., & Susta, D. (2018). Intermittent hypoxia-hyperoxia conditioning improves cardiorespiratory fitness in older comorbid cardiac outpatients without hematological changes: A randomized controlled trial. High Altitude Medicine & Biology, 19, 339–343.
Ehrenreich, H., Garcia-Agudo, L. F., Steixner-Kumar, A. A., Wilke, J. B. H., & Butt, U. J. (2022). Introducing the brain erythropoietin circle to explain adaptive brain hardware upgrade and improved performance. Molecular Psychiatry, 27(5), 2372–2379.
Ehrenreich, H., Gassmann, M., Poustka, L., Burtscher, M., Hammermann, P., Sirén, A.-L., Nave, K.-A., & Miskowiak, K. (2023). Exploiting moderate hypoxia to benefit patients with brain disease: Molecular mechanisms and translational research in progress. Neuroprotection, 1(1), 9–19.
El-Chami, M., Sudan, S., Lin, H.o-S., & Mateika, J. H. (2017). Exposure to intermittent hypoxia and sustained hypercapnia reduces therapeutic CPAP in participants with obstructive sleep apnea. Journal of Applied Physiology, 123(4), 993–1002.
Источники 65–68
Eltzschig, H. K., & Carmeliet, P. (2011). Hypoxia and inflammation. New England Journal of Medicine, 364(7), 656–665.
Esparza-Moltó, P. B., Romero-Carramiñana, I., Núñez De Arenas, C., Pereira, M. P., Blanco, N., Pardo, B., Bates, G. R., Sánchez-Castillo, C., Artuch, R., Murphy, M. P., Esteban, J. A., & Cuezva, J. M. (2021). Generation of mitochondrial reactive oxygen species is controlled by ATPase inhibitory factor 1 and regulates cognition. PLoS Biology, 19(5), e3001252.
Estrada, J. A., Williams, A. G., Sun, J., Gonzalez, L., Downey, H. F., Caffrey, J. L., & Mallet, R. T. (2016). delta-Opioid receptor (DOR) signaling and reactive oxygen species (ROS) mediate intermittent hypoxia induced protection of canine myocardium. Basic Research in Cardiology, 111(2), 17.
Etulain, J., Negrotto, S., Carestia, A., Pozner, R., Romaniuk, M., D’atri, L., Klement, G., & Schattner, M. (2012). Acidosis downregulates platelet haemostatic functions and promotes neutrophil proinflammatory responses mediated by platelets. Thrombosis and Haemostasis, 107(01), 99–110.
Источники 69–72
Fernández-Agüera, M. C., Gao, L., González-Rodríguez, P., Pintado, C. O., Arias-Mayenco, I., García-Flores, P., García-Pergañeda, A., Pascual, A., Ortega-Sáenz, P., & López-Barneo, J. (2015). Oxygen sensing by arterial chemoreceptors depends on mitochondrial complex I signaling. Cell Metabolism, 22(5), 825–837.
Fernández-Lázaro, D., Mielgo-Ayuso, J., Adams, D. P., González-Bernal, J. J., Fernández Araque, A., Cano García, A., & Fernández-Lázaro, C. I. (2020). Electromyography: A simple and accessible tool to assess physical performance and health during hypoxia training. A systematic review. Sustainability, 12(21), 9137.
Forster, H. V., & Smith, C. A. (2010). Contributions of central and peripheral chemoreceptors to the ventilatory response to CO2/H+. Journal of Applied Physiology, 108(4), 989–994.
Foskolou, I. P., Jorgensen, C., Leszczynska, K. B., Olcina, M. M., Tarhonskaya, H., Haisma, B., D’angiolella, V., Myers, W. K., Domene, C., Flashman, E., & Hammond, E. M. (2017). Ribonucleotide reductase requires subunit switching in hypoxia to maintain DNA replication. Molecular Cell, 66(2), 206–220.e9.e209.
Источники 73–77
Foster, G. E., Brugniaux, J. V., Pialoux, V., Duggan, C. T. C., Hanly, P. J., Ahmed, S. B., & Poulin, M. J. (2009). Cardiovascular and cerebrovascular responses to acute hypoxia following exposure to intermittent hypoxia in healthy humans. The Journal of Physiology, 587(13), 3287–3299.
Friedl, P. (2004). Prespecification and plasticity: Shifting mechanisms of cell migration. Current Opinion in Cell Biology, 16(1), 14–23.
Fukuda, R., Zhang, H., Kim, J.-W., Shimoda, L., Dang, C. V., & Semenza, G. L. (2007). HIF-1 regulates cytochrome oxidase subunits to optimize efficiency of respiration in hypoxic cells. Cell, 129(1), 111–122.
Funk, G. D., & Gourine, A. V. (2018). CrossTalk proposal: A central hypoxia sensor contributes to the excitatory hypoxic ventilatory response. The Journal of Physiology, 596(15), 2935–2938.
Furian, M., Bitos, K., Hartmann, S. E., Muralt, L., Lichtblau, M., Bader, P. R., Rawling, J. M., Ulrich, S., Poulin, M. J., & Bloch, K. E. (2022). Acute high altitude exposure, acclimatization and re-exposure on nocturnal breathing. Frontiers in Physiology, 13, 965021.
Источники 78–81
Gangwar, A., Pooja, Sharma, M., Singh, K., Patyal, A., Bhaumik, G., Bhargava, K., & Sethy, N. K. (2019). Intermittent normobaric hypoxia facilitates high altitude acclimatization by curtailing hypoxia-induced inflammation and dyslipidemia. Pflugers Archiv: European Journal of Physiology, 471(7), 949–959.
Gao, C.-J., Niu, L., Ren, P.-C., Wang, W., Zhu, C., Li, Y.-Q., Chai, W., & Sun, X.-D. (2012). Hypoxic preconditioning attenuates global cerebral ischemic injury following asphyxial cardiac arrest through regulation of delta opioid receptor system. Neuroscience, 202, 352–362.
Gerst, D. G., Yokhana, S. S., Carney, L. M., Lee, D. S., Badr, M. S., Qureshi, T., Anthouard, M. N., & Mateika, J. H. (2011). The hypoxic ventilatory response and ventilatory long-term facilitation are altered by time of day and repeated daily exposure to intermittent hypoxia. Journal of Applied Physiology, 110(1), 15–28.
Gibson, O. R., Taylor, L., Watt, P. W., & Maxwell, N. S. (2017). Cross-adaptation: Heat and cold adaptation to improve physiological and cellular responses to hypoxia. Sports Medicine, 47(9), 1751–1768.
Источники 82–86
Glazachev, O., Kopylov, P., Susta, D., Dudnik, E., & Zagaynaya, E. (2017). Adaptations following an intermittent hypoxia-hyperoxia training in coronary artery disease patients: A controlled study. Clinical Cardiology, 40(6), 370–376.
Glazachev, O. S., Kryzhanovskaya, S. Y.u, Zapara, M. A., Dudnik, E. N., Samartseva, V. G., & Susta, D. (2021). Safety and efficacy of intermittent hypoxia conditioning as a new rehabilitation/secondary prevention strategy for patients with cardiovascular diseases: A systematic review and meta-analysis. Current Cardiology Reviews, 17(6), e051121193317.
Godoy, L. D., Rossignoli, M. T., Delfino-Pereira, P., Garcia-Cairasco, N., & De Lima Umeoka, E. H. (2018). A comprehensive overview on stress neurobiology: Basic concepts and clinical implications. Frontiers in Behavioral Neuroscience, 12, 127.
Gonchar, O., & Mankovska, I. (2012). Moderate hypoxia/hyperoxia attenuates acute hypoxia-induced oxidative damage and improves antioxidant defense in lung mitochondria. Acta Physiologica Hungarica, 99(4), 436–446.
Gordan, J. D., Bertout, J. A., Hu, C.-J., Diehl, J. A., & Simon, M. C. (2007). HIF-2α promotes hypoxic cell proliferation by enhancing c-Myc transcriptional activity. Cancer Cell, 11(4), 335–347.
Источники 87–91
Goridis, C., & Brunet, J.-F. (2010). Central chemoreception: Lessons from mouse and human genetics. Respiratory Physiology & Neurobiology, 173(3), 312–321.
Gourine, A. V., & Funk, G. D. (2017). On the existence of a central respiratory oxygen sensor. Journal of Applied Physiology, 123(5), 1344–1349.
Guan, Y., Gu, Y., Shao, H., Ma, W., Li, G., Guo, M., Shao, Q., Li, Y., Liu, Y., Wang, C., Tian, Z., Liu, J., & Ji, X. (2023). Intermittent hypoxia protects against hypoxic-ischemic brain damage by inducing functional angiogenesis. Journal of Cerebral Blood Flow and Metabolism, 43(10), 1656–1671.
Guan, Y., Liu, J., Gu, Y., & Ji, X. (2023). Effects of hypoxia on cerebral microvascular angiogenesis: Benefits or damages? Aging and Disease, 14(2), 370–385.
Guner, I., Uzun, D. D., Yaman, M. O., Genc, H., Gelisgen, R., Korkmaz, G. G., Hallac, M., Yelmen, N., Sahin, G., Karter, Y., & Simsek, G. (2013). The effect of chronic long-term intermittent hypobaric hypoxia on bone mineral density in rats: Role of nitric oxide. Biological Trace Element Research, 154(2), 262–267.
Источники 92–96
Gusarova, G. A., Dada, L. A., Kelly, A. M., Brodie, C., Witters, L. A., Chandel, N. S., & Sznajder, J. I. (2009). Alpha1-AMP-activated protein kinase regulates hypoxia-induced Na,K-ATPase endocytosis via direct phosphorylation of protein kinase C zeta. Molecular and Cellular Biology, 29(13), 3455–3464.
Guyenet, P. G., Stornetta, R. L., Souza, G. M. P. R., Abbott, S. B. G., Shi, Y., & Bayliss, D. A. (2019). The retrotrapezoid nucleus: Central chemoreceptor and regulator of breathing automaticity. Trends in Neuroscience (Tins), 42(11), 807–824.
Haase, V. H. (2013). Regulation of erythropoiesis by hypoxia-inducible factors. Blood Reviews, 27(1), 41–53.
Haider, T., Casucci, G., Linser, T., Faulhaber, M., Gatterer, H., Ott, G., Linser, A., Ehrenbourg, I., Tkatchouk, E., Burtscher, M., & Bernardi, L. (2009). Interval hypoxic training improves autonomic cardiovascular and respiratory control in patients with mild chronic obstructive pulmonary disease. Journal of Hypertension, 27(8), 1648–1654.
Ham, P. B., & Raju, R. (2017). Mitochondrial function in hypoxic ischemic injury and influence of aging. Progress in Neurobiology, 157, 92–116.
Источники 97–99
Hao, T., Yu, J., Wu, Z., Jiang, J., Gong, L., Wang, B., Guo, H., Zhao, H., Lu, B., Engelender, S., He, H.e, & Song, Z. (2023). Hypoxia-reprogramed megamitochondrion contacts and engulfs lysosome to mediate mitochondrial self-digestion. Nature Communications, 14(1), 4105.
Harris, D. P., Balasubramaniam, A., Badr, M. S., & Mateika, J. H. (2006). Long-term facilitation of ventilation and genioglossus muscle activity is evident in the presence of elevated levels of carbon dioxide in awake humans. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 291(4), R1111–R1119.
Haufe, S., Wiesner, S., Engeli, S., Luft, F. C., & Jordan, J. (2008). Influences of normobaric hypoxia training on metabolic risk markers in human subjects. Medicine and Science in Sports and Exercise, 40(11), 1939–1944.
Источники 100–102
Hayashi, T., Asano, Y., Shintani, Y., Aoyama, H., Kioka, H., Tsukamoto, O., Hikita, M., Shinzawa-Itoh, K., Takafuji, K., Higo, S., Kato, H., Yamazaki, S., Matsuoka, K., Nakano, A., Asanuma, H., Asakura, M., Minamino, T., Goto, Y.u-I., Ogura, T., Kitakaze, M., Komuro, I., Sakata, Y., Tsukihara, T., Yoshikawa, S., & Takashima, S. (2015). Higd1a is a positive regulator of cytochrome c oxidase. Proceedings of the National Academy of Sciences, 112(5), 1553–1558.
Hayes, H. B., Jayaraman, A., Herrmann, M., Mitchell, G. S., Rymer, W. Z., & Trumbower, R. D. (2014). Daily intermittent hypoxia enhances walking after chronic spinal cord injury: a randomized trial. Neurology, 82(2), 104–113.
Hoiland, R. L., Bain, A. R., Rieger, M. G., Bailey, D. M., & Ainslie, P. N. (2016). Hypoxemia, oxygen content, and the regulation of cerebral blood flow. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 310(5), R398–R413.
Источники 103–106
Holmquist-Mengelbier, L., Fredlund, E., Löfstedt, T., Noguera, R., Navarro, S., Nilsson, H., Pietras, A., Vallon-Christersson, J., Borg, Å., Gradin, K., Poellinger, L., & Påhlman, S. (2006). Recruitment of HIF-1α and HIF-2α to common target genes is differentially regulated in neuroblastoma: HIF-2α promotes an aggressive phenotype. Cancer Cell, 10(5), 413–423.
Hsiao, H.-T., Lin, Y.-C., Wang, J. C.-F., Tsai, Y.-C., & Liu, Y.-C. (2016). Hypoxia inducible factor-1α inhibition produced anti-allodynia effect and suppressed inflammatory cytokine production in early stage of mouse complex regional pain syndrome model. Clinical and Experimental Pharmacology & Physiology, 43(3), 355–359.
Iturriaga, R. (2023). Carotid body contribution to the physio-pathological consequences of intermittent hypoxia: Role of nitro-oxidative stress and inflammation. The Journal of Physiology. Advance Online Publication. https://doi.org/10.1113/JP284112
Iturriaga, R., Alcayaga, J., Chapleau, M. W., & Somers, V. K. (2021). Carotid body chemoreceptors: Physiology, pathology, and implications for health and disease. Physiological Reviews, 101(3), 1177–1235.
Источники 107–110
Iyer, N. V., Kotch, L. E., Agani, F., Leung, S. W., Laughner, E., Wenger, R. H., Gassmann, M., Gearhart, J. D., Lawler, A. M., Yu, A. Y., & Semenza, G. L. (1998). Cellular and developmental control of O2 homeostasis by hypoxia-inducible factor 1 alpha. Genes & Development, 12(2), 149–162.
Jarrard, C. P., Nagel, M. J., Stray-Gundersen, S., Tanaka, H., & Lalande, S. (2021). Hypoxic preconditioning attenuates ischemia-reperfusion injury in young healthy adults. Journal of Applied Physiology, 130(3), 846–852.
Jaśkiewicz, M., Moszyńska, A., Króliczewski, J., Cabaj, A., Bartoszewska, S., Charzyńska, A., Gebert, M., Dąbrowski, M., Collawn, J. F., & Bartoszewski, R. (2022). The transition from HIF-1 to HIF-2 during prolonged hypoxia results from reactivation of PHDs and HIF1A mRNA instability. Cellular & Molecular Biology Letters, 27(1), 109.
Jiang, B. H., Semenza, G. L., Bauer, C., & Marti, H. H. (1996). Hypoxia-inducible factor 1 levels vary exponentially over a physiologically relevant range of O2 tension. American Journal of Physiology, 271(4), C1172–C1180.
Источники 111–115
Jiménez-Gómez, B., Ortega-Sáenz, P., Gao, L., González-Rodríguez, P., García-Flores, P., Chandel, N., & López-Barneo, J. (2023). Transgenic NADH dehydrogenase restores oxygen regulation of breathing in mitochondrial complex I-deficient mice. Nature Communications, 14(1), 1172.
Ju, X., Mallet, R. T., Downey, H. F., Metzger, D. B., & Jung, M. E. (2012). Intermittent hypoxia conditioning protects mitochondrial cytochrome c oxidase of rat cerebellum from ethanol withdrawal stress. Journal of Applied Physiology, 112(10), 1706–1714.
Jugdutt, B. I. (2002). Nitric oxide and cardioprotection during ischemia-reperfusion. Heart Failure Reviews, 7(4), 391–405.
Jung, M. E., Simpkins, J. W., Wilson, A. M., Downey, H. F., & Mallet, R. T. (2008). Intermittent hypoxia conditioning prevents behavioral deficit and brain oxidative stress in ethanol-withdrawn rats. Journal of Applied Physiology, 105(2), 510–517.
Kallenborn-Gerhardt, W., Schroder, K., Del Turco, D., Lu, R., Kynast, K., Kosowski, J., Niederberger, E., Shah, A. M., Brandes, R. P., Geisslinger, G., & Schmidtko, A. (2012). NADPH oxidase-4 maintains neuropathic pain after peripheral nerve injury. Journal of Neuroscience, 32(30), 10136–10145.
Источники 116–120
Kanngiesser, M., Mair, N., Lim, H. Y., Zschiebsch, K., Blees, J., Häussler, A., Brüne, B., Ferreiròs, N., Kress, M., & Tegeder, I. (2014). Hypoxia-inducible factor 1 regulates heat and cold pain sensitivity and persistence. Antioxidants & Redox Signaling, 20, 2555–2571.
Katayama, K., Yoshitake, Y., Watanabe, K., Akima, H., & Ishida, K. (2010). Muscle deoxygenation during sustained and intermittent isometric exercise in hypoxia. Medicine and Science in Sports and Exercise, 42(7), 1269–1278.
Kayser, B., & Verges, S. (2013). Hypoxia, energy balance and obesity: From pathophysiological mechanisms to new treatment strategies. Obesity Reviews, 14(7), 579–592.
Keir, D. A., Duffin, J., Millar, P. J., & Floras, J. S. (2019). Simultaneous assessment of central and peripheral chemoreflex regulation of muscle sympathetic nerve activity and ventilation in healthy young men. The Journal of Physiology, 597(13), 3281–3296.
Keith, B., Johnson, R. S., & Simon, M. C. (2011). HIF1α and HIF2α: Sibling rivalry in hypoxic tumour growth and progression. Nature Reviews Cancer, 12(1), 9–22.
Источники 121–124
Kelly, M. N., Smith, D. N., Sunshine, M. D., Ross, A., Zhang, X., Gumz, M. L., Esser, K. A., & Mitchell, G. S. (2020). Circadian clock genes and respiratory neuroplasticity genes oscillate in the phrenic motor system. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 318(6), R1058–R1067.
Kemp, P. J., Lewis, A., Hartness, M. E., Searle, G. J., Miller, P., O’kelly, I., & Peers, C. (2002). Airway chemotransduction: from oxygen sensor to cellular effector. American Journal of Respiratory and Critical Care Medicine, 166(1), S17–S24.
Khodadadeh, B., Badr, M. S., & Mateika, J. H. (2006). The ventilatory response to carbon dioxide and sustained hypoxia is enhanced after episodic hypoxia in OSA patients. Respiratory Physiology & Neurobiology, 150(2–3), 122–134.
Kim, J.-W., Tchernyshyov, I., Semenza, G. L., & Dang, C. V. (2006). HIF-1-mediated expression of pyruvate dehydrogenase kinase: A metabolic switch required for cellular adaptation to hypoxia. Cell Metabolism, 3(3), 177–185.
Источники 125–129
Kong, Z., Zang, Y., & Hu, Y. (2014). Normobaric hypoxia training causes more weight loss than normoxia training after a 4-week residential camp for obese young adults. Sleep & breathing = Schlaf & Atmung, 18(3), 591–597.
Krook, A., Wallberg-Henriksson, H., & Zierath, J. R. (2004). Sending the signal: Molecular mechanisms regulating glucose uptake. Medicine and Science in Sports and Exercise, 36(7), 1212–1217.
Kuroda, J., Ago, T., Nishimura, A., Nakamura, K., Matsuo, R., Wakisaka, Y., Kamouchi, M., & Kitazono, T. (2014). Nox4 is a major source of superoxide production in human brain pericytes. Journal of Vascular Research, 51(6), 429–438.
Kushwah, N., Jain, V., Deep, S., Prasad, D., Singh, S. B., & Khan, N. (2016). Neuroprotective role of intermittent hypobaric hypoxia in unpredictable chronic mild stress induced depression in rats. PLoS ONE, 11(2), e0149309. [ОТОЗВАНА 7 февраля 2025 года; DOI уведомления 10.1371/journal.pone.0319289.]
Lam, K. K., Kunder, S., Wong, J., Doufas, A. G., & Chung, F. (2016). Obstructive sleep apnea, pain, and opioids: Is the riddle solved? Current Opinion in Anaesthesiology, 29(1), 134–140.
Источники 130–134
Latshang, T. D., Tardent, R. P. M., Furian, M., Flueck, D., Segitz, S. D., Mueller-Mottet, S., Kohler, M., Ulrich, S., & Bloch, K. E. (2019). Sleep and breathing disturbances in patients with chronic obstructive pulmonary disease traveling to altitude: A randomized trial. Sleep, 42(1). https://doi.org/10.1093/sleep/zsy203
Lavie, L. (2005). Sleep-disordered breathing and cerebrovascular disease: A mechanistic approach. Neurologic Clinics, 23(4), 1059–1075.
Lavie, P., & Lavie, L. (2009). Unexpected survival advantage in elderly people with moderate sleep apnoea. Journal of Sleep Research, 18(4), 397–403.
Lee, D. S., Badr, M. S., & Mateika, J. H. (2009). Progressive augmentation and ventilatory long-term facilitation are enhanced in sleep apnoea patients and are mitigated by antioxidant administration. The Journal of Physiology, 587(22), 5451–5467.
Lee, E. S., Smith, W. E.d, Quach, H. T., Jones, B. D., Santilli, S. M., & Vatassery, G. T. (2005). Moderate hyperoxia (40%) increases antioxidant levels in mouse tissue. Journal of Surgical Research, 127(2), 80–84.
Источники 135–140
Lee, J., Kim, H. S., Kim, S. M., Kim, D. I., & Lee, C. W. (2018). Hypoxia upregulates mitotic cyclins which contribute to the multipotency of human mesenchymal stem cells by expanding proliferation lifespan. Molecules and Cells, 41(3), 207–213.
Lee, P., Chandel, N. S., & Simon, M. C. (2020). Cellular adaptation to hypoxia through hypoxia inducible factors and beyond. Nature Reviews Molecular Cell Biology, 21(5), 268–283.
Lee, W.-C., Guntur, A. R., Long, F., & Rosen, C. J. (2017). Energy metabolism of the osteoblast: Implications for osteoporosis. Endocrine Reviews, 38(3), 255–266.
Lendahl, U., Lee, K. L., Yang, H., & Poellinger, L. (2009). Generating specificity and diversity in the transcriptional response to hypoxia. Nature Reviews Genetics, 10(12), 821–832.
Lestón Pinilla, L., Ugun-Klusek, A., Rutella, S., & De Girolamo, L. A. (2021). Hypoxia signaling in Parkinson’s Disease: There is use in asking “What HIF?”. Biology, 10, 723.
Li, G., Guan, Y., Gu, Y., Guo, M., Ma, W., Shao, Q., Liu, J., & Ji, X. (2023). Intermittent hypoxic conditioning restores neurological dysfunction of mice induced by long-term hypoxia. CNS Neuroscience & Therapeutics, 29(1), 202–215.
Источники 141–146
Li, S., Hafeez, A., Noorulla, F., Geng, X., Shao, G., Ren, C., Lu, G., Zhao, H., Ding, Y., & Ji, X. (2017). Preconditioning in neuroprotection: From hypoxia to ischemia. Progress in Neurobiology, 157, 79–91.
Li, X.-L., Wang, W.-G., Li, M.-X., Liu, T.-L., Tian, X.-Y.u, & Wu, L. (2022). Effects of altitude and duration of differing levels of hypoxic exposure on hypoxia-inducible factor-1α in rat tissues. High Altitude Medicine & Biology, 23(2), 173–184.
Li, Y., Zhang, Y., & Zhang, Y. (2018). Research advances in pathogenesis and prophylactic measures of acute high altitude illness. Respiratory Medicine, 145, 145–152.
Lindholm, M. E., & Rundqvist, H. (2016). Skeletal muscle hypoxia-inducible factor-1 and exercise. Experimental Physiology, 101(1), 28–32.
Liu, L., Cash, T. P., Jones, R. G., Keith, B., Thompson, C. B., & Simon, M. C. (2006). Hypoxia-induced energy stress regulates mRNA translation and cell growth. Molecular cell, 21(4), 521–531.
Liu, X., & Hajnoczky, G. (2011). Altered fusion dynamics underlie unique morphological changes in mitochondria during hypoxia–reoxygenation stress. Cell Death & Differentiation, 18, 1561–1572.
Источники 147–151
Lizamore, C. A., & Hamlin, M. J. (2017). The use of simulated altitude techniques for beneficial cardiovascular health outcomes in nonathletic, sedentary, and clinical populations: A literature review. High Altitude Medicine & Biology, 18(4), 305–321.
López-Barneo, J., González-Rodríguez, P., Gao, L., Fernández-Agüera, M. C., Pardal, R., & Ortega-Sáenz, P. (2016). Oxygen sensing by the carotid body: Mechanisms and role in adaptation to hypoxia. American Journal of Physiology. Cell Physiology, 310(8), C629–C642.
Luks, A. M., & Hackett, P. H. (2022). Medical conditions and high-altitude travel. New England Journal of Medicine, 386(4), 364–373.
Lyamina, N. P., Lyamina, S. V., Senchiknin, V. N., Mallet, R. T., Downey, H. F., & Manukhina, E. B. (2011). Normobaric hypoxia conditioning reduces blood pressure and normalizes nitric oxide synthesis in patients with arterial hypertension. Journal of Hypertension, 29(11), 2265–2272.
Ma, M.-C., Qian, H., Ghassemi, F., Zhao, P., & Xia, Y. (2005). Oxygen-sensitive {delta}-opioid receptor-regulated survival and death signals: Novel insights into neuronal preconditioning and protection. The Journal of Biological Chemistry, 280(16), 16208–16218.
Источники 152–156
Mackenzie, R., Maxwell, N., Castle, P., Brickley, G., & Watt, P. (2011). Acute hypoxia and exercise improve insulin sensitivity (S(I) (2 )) in individuals with type 2 diabetes. Diabetes Metabolism Research and Reviews, 27(1), 94–101.
Mallet, R. T., Burtscher, J., Richalet, J.-P., Millet, G. P., & Burtscher, M. (2021). Impact of high altitude on cardiovascular health: Current perspectives. Vascular Health and Risk Management, 17, 317–335.
Mallet, R. T., Ryou, M.-G., Williams, A. G., Howard, L., & Downey, H. F. (2006). Beta1-Adrenergic receptor antagonism abrogates cardioprotective effects of intermittent hypoxia. Basic Research in Cardiology, 101(5), 436–446.
Manella, G., Aviram, R., Bolshette, N., Muvkadi, S., Golik, M., Smith, D. F., & Asher, G. (2020). Hypoxia induces a timeand tissue-specific response that elicits intertissue circadian clock misalignment. Proceedings of the National Academy of Sciences, USA, 117(1), 779–786.
Manimmanakorn, A., Manimmanakorn, N., Taylor, R., Draper, N., Billaut, F., Shearman, J. P., & Hamlin, M. J. (2013). Effects of resistance training combined with vascular occlusion or hypoxia on neuromuscular function in athletes. European Journal of Applied Physiology, 113(7), 1767–1774.
Источники 157–160
Manukhina, E. B., Belkina, L. M., Terekhina, O. L., Abramochkin, D. V., Smirnova, E. A., Budanova, O. P., Mallet, R. T., & Downey, H. F. (2013). Normobaric, intermittent hypoxia conditioning is cardio- and vasoprotective in rats. Experimental Biology and Medicine, 238(12), 1413–1420.
Manukhina, E. B., Downey, H. F., & Mallet, R. T. (2006). Role of nitric oxide in cardiovascular adaptation to intermittent hypoxia. Experimental Biology and Medicine, 231(4), 343–365.
Manukhina, E. B., Downey, H. F., Shi, X., & Mallet, R. T. (2016). Intermittent hypoxia training protects cerebrovascular function in Alzheimer’s disease. Experimental Biology and Medicine, 241(12), 1351–1363.
Manukhina, E. B., Pshennikova, M. G., Goryacheva, A. V., Khomenko, I. P., Mashina, S. Y.u., Pokidyshev, D. A., & Malyshev, I. Y. (2008). Role of nitric oxide in prevention of cognitive disorders in neurodegenerative brain injuries in rats. Bulletin of Experimental Biology and Medicine, 146(4), 391–395.
Источники 161–163
Manukhina, E. B., Tseilikman, V. E., Karpenko, M. N., Pestereva, N. S., Tseilikman, O. B., Komelkova, M. V., Kondashevskaya, M. V., Goryacheva, A. V., Lapshin, M. S., Platkovskii, P. O., Sarapultsev, A. P., Alliluev, A. V., & Downey, H. F. (2020). Intermittent hypoxic conditioning alleviates post-traumatic stress disorder-induced damage and dysfunction of rat visceral organs and brain. International Journal of Molecular Sciences, 21(1), 345.
Manukhina, E. B., Tseilikman, V. E., Tseilikman, O. B., Komelkova, M. V., Kondashevskaya, M. V., Goryacheva, A. V., Lapshin, M. S., Platkovskii, P. O., Alliluev, A. V., & Downey, H. F. (2018). Intermittent hypoxia improves behavioral and adrenal gland dysfunction induced by posttraumatic stress disorder in rats. Journal of Applied Physiology, 125(3), 931–937.
Mashina, S. Y.u., Aleksandrin, V. V., Goryacheva, A. V., Vlasova, M. A., Vanin, A. F., Malyshev, I. Y.u., & Manukhina, E. B. (2006). Adaptation to hypoxia prevents disturbances in cerebral blood flow during neurodegenerative process. Bulletin of Experimental Biology and Medicine, 142(2), 169–172.
Источники 164–167
Mateika, J. H., Mendello, C., Obeid, D., & Badr, M. S. (2004). Peripheral chemoreflex responsiveness is increased at elevated levels of carbon dioxide after episodic hypoxia in awake humans. Journal of Applied Physiology, 96(3), 1197–1205. discussion 1196.
Mateika, J. H., Panza, G., Alex, R., & El-Chami, M. (2018). The impact of intermittent or sustained carbon dioxide on intermittent hypoxia initiated respiratory plasticity. What is the effect of these combined stimuli on apnea severity? Respiratory Physiology & Neurobiology, 256, 58–66.
Matu, J., Gonzalez, J. T., Ispoglou, T., Duckworth, L., & Deighton, K. (2018). The effects of hypoxia on hunger perceptions, appetite-related hormone concentrations and energy intake: A systematic review and meta-analysis. Appetite, 125, 98–108.
Menuet, C., Connelly, A. A., Bassi, J. K., Melo, M. R., Le, S., Kamar, J., Kumar, N. N., Mcdougall, S. J., Mcmullan, S., & Allen, A. M. (2020). PreBötzinger complex neurons drive respiratory modulation of blood pressure and heart rate. eLife, 9, e57288.
Источники 168–170
Metallo, C. M., Gameiro, P. A., Bell, E. L., Mattaini, K. R., Yang, J., Hiller, K., Jewell, C. M., Johnson, Z. R., Irvine, D. J., Guarente, L., Kelleher, J. K., Vander Heiden, M. G., Iliopoulos, O., & Stephanopoulos, G. (2011). Reductive glutamine metabolism by IDH1 mediates lipogenesis under hypoxia. Nature, 481(7381), 380–384.
Meyer, M. J., Mordukhovich, I., Wellenius, G. A., Mittleman, M. A., Mccracken, J. P., Coull, B. A., & Mcneely, E. (2019). Changes in heart rate and rhythm during a crossover study of simulated commercial flight in older and vulnerable participants. Frontiers in Physiology, 10, 1339.
Midha, A. D., Zhou, Y., Queliconi, B. B., Barrios, A. M., Haribowo, A. G., Chew, B. T. L., Fong, C. O. Y., Blecha, J. E., Vanbrocklin, H., Seo, Y., & Jain, I. H. (2023). Organ-specific fuel rewiring in acute and chronic hypoxia redistributes glucose and fatty acid metabolism. Cell Metabolism, 35(3), 504–516.e5. e505.
Источники 171–174
Milano, G., Abruzzo, P. M., Bolotta, A., Marini, M., Terraneo, L., Ravara, B., Gorza, L., Vitadello, M., Burattini, S., Curzi, D., Falcieri, E., Von Segesser, L. K., & Samaja, M. (2013). Impact of the phosphatidylinositide 3-kinase signaling pathway on the cardioprotection induced by intermittent hypoxia. PLoS ONE, 8(10), e76659.
Miller, A. J., Sauder, C. L., Cauffman, A. E., Blaha, C. A., & Leuenberger, U. A. (2017). Endurance training attenuates the increase in peripheral chemoreflex sensitivity with intermittent hypoxia. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 312(2), R223–R228.
Millet, G. P., Roels, B., Schmitt, L., Woorons, X., & Richalet, J. P. (2010). Combining hypoxic methods for peak performance. Sports Medicine, 40(1), 1–25.
Mole, D. R., Blancher, C., Copley, R. R., Pollard, P. J., Gleadle, J. M., Ragoussis, J., & Ratcliffe, P. J. (2009). Genome-wide association of hypoxia-inducible factor (HIF)-1α and HIF-2α DNA binding with expression profiling of hypoxia-inducible transcripts. Journal of Biological Chemistry, 284(25), 16767–16775.
Источники 175–178
Morelli, C., Badr, M. S., & Mateika, J. H. (2004). Ventilatory responses to carbon dioxide at low and high levels of oxygen are elevated after episodic hypoxia in men compared with women. Journal of Applied Physiology, 97(5), 1673–1680.
Moreno-Domínguez, A., Ortega-Sáenz, P., Gao, L., Colinas, O., García-Flores, P., Bonilla-Henao, V., Aragonés, J., Hüttemann, M., Grossman, L. I., Weissmann, N., Sommer, N., & López-Barneo, J. (2020). Acute O(2) sensing through HIF2α-dependent expression of atypical cytochrome oxidase subunits in arterial chemoreceptors. Science Signaling, 13(615), eaay9452.
Moulin, S., Arnaud, C., Bouyon, S., Pépin, J.-L., Godin-Ribuot, D., & Belaidi, E. (2020). Curcumin prevents chronic intermittent hypoxia-induced myocardial injury. Therapeutic Advances in Chronic Disease, 11, 204062232092210.
Muangritdech, N., Hamlin, M. J., Sawanyawisuth, K., Prajumwongs, P., Saengjan, W., Wonnabussapawich, P., Manimmanakorn, N., & Manimmanakorn, A. (2020). Hypoxic training improves blood pressure, nitric oxide and hypoxia-inducible factor-1 alpha in hypertensive patients. European Journal of Applied Physiology, 120(8), 1815–1826.
Источники 179–183
Mulkey, D. K., Rosin, D. L., West, G., Takakura, A. C., Moreira, T. S., Bayliss, D. A., & Guyenet, P. G. (2007). Serotonergic neurons activate chemosensitive retrotrapezoid nucleus neurons by a pH-independent mechanism. Journal of Neuroscience, 27(51), 14128–14138.
Nanduri, J., Vaddi, D. R., Khan, S. A., Wang, N., Makerenko, V., & Prabhakar, N. R. (2013). Xanthine oxidase mediates hypoxia-inducible factor-2α degradation by intermittent hypoxia. PLoS ONE, 8(10), e75838.
Navarrete-Opazo, A., & Mitchell, G. S. (2014). Therapeutic potential of intermittent hypoxia: A matter of dose. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 307(10), R1181–R1197.
Netzer, N., Gatterer, H., Faulhaber, M., Burtscher, M., Pramsohler, S., & Pesta, D. (2015). Hypoxia, oxidative stress and fat. Biomolecules, 5(2), 1143–1150.
Nichols, N. L., & Mitchell, G. S. (2021). Mechanisms of severe acute intermittent hypoxia-induced phrenic long-term facilitation. Journal of Neurophysiology, 125(4), 1146–1156.
Источники 184–188
Olcina, M. M., Foskolou, I. P., Anbalagan, S., Senra, J. M., Pires, I. M., Jiang, Y., Ryan, A. J., & Hammond, E. M. (2013). Replication stress and chromatin context link ATM activation to a role in DNA replication. Molecular cell, 52(5), 758–766.
Pamenter, M. E., & Powell, F. L. (2016). Time domains of the hypoxic ventilatory response and their molecular basis. Comprehensive Physiology, 6(3), 1345–1385.
Panza, G. S., Alex, R. M., Yokhana, S. S., Lee Pioszak, D. S., Badr, M. S., & Mateika, J. H. (2019). Increased oxidative stress, loop gain and the arousal threshold are clinical predictors of increased apnea severity following exposure to intermittent hypoxia. Nature and Science of Sleep, 11, 265–279.
Panza, G. S., Burtscher, J., & Zhao, F. (2023). Intermittent Hypoxia: A call for harmonization in terminology. Journal of Applied Physiology, 135(4), 886–890,
Panza, G. S., Puri, S., Lin, H.o-S., Badr, M. S., & Mateika, J. H. (2022). Daily exposure to mild intermittent hypoxia reduces blood pressure in male OSA patients with hypertension. American Journal of Respiratory and Critical Care Medicine, 205(8), 949–958.
Источники 189–193
Panza, G. S., Puri, S., Lin, H.-S., & Mateika, J. H. (2022). Divergent ventilatory and blood pressure responses are evident following repeated daily exposure to mild intermittent hypoxia in males with OSA and hypertension. Frontiers in Physiology, 13, 897978.
Papandreou, I., Cairns, R. A., Fontana, L., Lim, A.i L., & Denko, N. C. (2006). HIF-1 mediates adaptation to hypoxia by actively downregulating mitochondrial oxygen consumption. Cell Metabolism, 3(3), 187–197.
Parati, G., Ochoa, J. E., Torlasco, C., Salvi, P., Lombardi, C., & Bilo, G. (2015). Aging, high altitude, and blood pressure: A complex relationship. High Altitude Medicine & Biology, 16(2), 97–109.
Pernett, F., Schagatay, F., Vildevi, C., & Schagatay, E. (2021). Spleen contraction during sudden eupneic hypoxia elevates hemoglobin concentration. Frontiers in Physiology, 12, 729123.
Pesta, D., Heieis, J., Hand, O., Frings-Meuthen, P., Marcus, K., Clemen, C. S., Levine, B., Sadek, H., Hoffmann, F., Limper, U., Jordan, J., Sies, W., Tank, J., Zange, J., & Rittweger, J. (2023). Case report: Muscle wasting during severe sustained hypoxia in two professional mountaineers. Medicine and Science in Sports and Exercise, 55(3), 335–341.
Источники 194–197
Prasad, B., Morgan, B. J., Gupta, A., Pegelow, D. F., Teodorescu, M., Dopp, J. M., & Dempsey, J. A. (2020). The need for specificity in quantifying neurocirculatory vs. respiratory effects of eucapnic hypoxia and transient hyperoxia. The Journal of Physiology, 598(21), 4803–4819.
Pueyo, M. E., Gonzalez, W., Nicoletti, A., Savoie, F., Arnal, J.-F., & Michel, J.-B. (2000). Angiotensin II stimulates endothelial vascular cell adhesion molecule-1 via nuclear factor-κ B activation induced by intracellular oxidative stress. Arteriosclerosis, Thrombosis, and Vascular biology, 20(3), 645–651.
Pulido-Escribano, V., Torrecillas-Baena, B., Camacho-Cardenosa, M., Dorado, G., Gálvez-Moreno, M. Á., & Casado-Díaz, A. (2022). Role of hypoxia preconditioning in therapeutic potential of mesenchymal stem-cell-derived extracellular vesicles. World Journal of Stem Cells, 14(7), 453–472.
Puri, S., El-Chami, M., Shaheen, D., Ivers, B., Panza, G. S., Badr, M. S., Lin, H.-S., & Mateika, J. H. (2020). Variations in loop gain and arousal threshold during NREM sleep are affected by time of day over a 24-hour period in participants with obstructive sleep apnea. Journal of Applied Physiology, 129(4), 800–809.
Источники 198–202
Puri, S., Panza, G., & Mateika, J. H. (2021). A comprehensive review of respiratory, autonomic and cardiovascular responses to intermittent hypoxia in humans. Experimental Neurology, 341, 113709.
Raberin, A., Burtscher, J., Connes, P., & Millet, G. P. (2022). Hypoxia and hemorheological properties in older individuals. Ageing Research Reviews, 79, 101650.
Radermacher, K. A., Wingler, K., Langhauser, F., Altenhofer, S., Kleikers, P., Hermans, J. J., Hrabe de Angelis, M., Kleinschnitz, C., & Schmidt, H. H. (2013). Neuroprotection after stroke by targeting NOX4 as a source of oxidative stress. Antioxidants & Redox Signaling, 18(12), 1418–1427.
Rasbach, K. A., Gupta, R. K., Ruas, J. L., Wu, J., Naseri, E., Estall, J. L., & Spiegelman, B. M. (2010). PGC-1alpha regulates a HIF2alpha-dependent switch in skeletal muscle fiber types. Proceedings of the National Academy of Sciences, USA, 107(50), 21866–21871.
Richardson, M. X., Lodin, A., Reimers, J., & Schagatay, E. (2008). Short-term effects of normobaric hypoxia on the human spleen. European Journal of Applied Physiology, 104(2), 395–399.
Источники 203–207
Ristow, M., & Schmeisser, K. (2014). Mitohormesis: Promoting health and lifespan by increased levels of reactive oxygen species (ROS). Dose Response, 12(2), 288–341.
Rodriguez, F. A., Casas, H., Casas, M., Pagés, T., Rama, R., Ricart, A., Ventura, J. L., Ibáñez, J., & Viscor, G. (1999). Intermittent hypobaric hypoxia stimulates erythropoiesis and improves aerobic capacity. Medicine & Science in Sports & Exercise, 31(2), 264–268.
Roy, J., Galano, J.-M., Durand, T., Le Guennec, J.-Y., & Chung-Yung Lee, J. (2017). Physiological role of reactive oxygen species as promoters of natural defenses. FASEB Journal, 31(9), 3729–3745.
Rybnikova, E., Mironova, V., Pivina, S., Tulkova, E., Ordyan, N., Nalivaeva, N., Turner, A., & Samoilov, M. (2007). Involvement of the hypothalamic-pituitary-adrenal axis in the antidepressant-like effects of mild hypoxic preconditioning in rats. Psychoneuroendocrinology, 32(7), 813–823.
Rybnikova, E., Mironova, V., Pivina, S., Tulkova, E., Ordyan, N., Vataeva, L., Vershinina, E., Abritalin, E., Kolchev, A., Nalivaeva, N., Turner, A. J., & Samoilov, M. (2007). Antidepressant-like effects of mild hypoxia preconditioning in the learned helplessness model in rats. Neuroscience Letters, 417(3), 234–239.
Источники 208–212
Rybnikova, E., & Nalivaeva, N. (2021). Glucocorticoid-dependent mechanisms of brain tolerance to hypoxia. International Journal of Molecular Sciences, 22(15), 7982.
Rybnikova, E., & Samoilov, M. (2015). Current insights into the molecular mechanisms of hypoxic pre- and postconditioning using hypobaric hypoxia. Frontiers in Neuroscience, 9, 388.
Rybnikova, E. A., Mironova, V. I., Pivina, S. G., Ordyan, N. E., Tulkova, E. I., & Samoilov, M. O. (2008). Hormonal mechanisms of neuroprotective effects of the mild hypoxic preconditioning in rats. Doklady Biological Sciences, 421(1), 239–240.
Rybnikova, E. A., Nalivaeva, N. N., Zenko, M. Y., & Baranova, K. A. (2022). Intermittent hypoxic training as an effective tool for increasing the adaptive potential, endurance and working capacity of the brain. Frontiers in Neuroscience, 16, 941740.
Rybnikova, E. A., Samoilov, M. O., Mironova, V. I., Tyul’kova, E. I., Pivina, S. G., Vataeva, L. A., Ordyan, N. É., Abritalin, E. Y.u., & Kolchev, A. I. (2008). The possible use of hypoxic preconditioning for the prophylaxis of post-stress depressive episodes. Neuroscience and Behavioral Physiology, 38(7), 721–726.
Источники 213–217
Ryou, M.-G., Chen, X., Cai, M., Wang, H., Jung, M. E., Metzger, D. B., Mallet, R. T., & Shi, X. (2021). Intermittent hypoxia training prevents deficient learning-memory behavior in mice modeling alzheimer’s disease: A pilot study. Frontiers in Aging Neuroscience, 13, 674688.
Ryou, M.-G., Sun, J., Oguayo, K. N., Manukhina, E. B., Downey, H. F., & Mallet, R. T. (2008). Hypoxic conditioning suppresses nitric oxide production upon myocardial reperfusion. Experimental Biology and Medicine, 233(6), 766–774.
Sandbichler, A. M., Jansen, B., Peer, B. A., Paulitsch, M., Pelster, B., & Egg, M. (2018). Metabolic plasticity enables circadian adaptation to acute hypoxia in zebrafish cells. Cellular Physiology and Biochemistry, 46(3), 1159–1174.
Sazontova, T. G., & Arkhipenko, I. V. (2005). [The role of free radical processes and redox-signalization in adaptation of the organism to changes in oxygen level]. Rossiiskii fiziologicheskii zhurnal imeni IM Sechenova, 91(6), 636–655.
Schito, L., & Semenza, G. L. (2016). Hypoxia-inducible factors: Master regulators of cancer progression. Trends in Cancer, 2(12), 758–770.
Источники 218–220
Schlittler, M., Gatterer, H., Turner, R., Regli, I. B., Woyke, S., Strapazzon, G., Rasmussen, P., Kob, M., Mueller, T., Goetze, J. P., Maillard, M., Van Hall, G., Feraille, E., & Siebenmann, C. (2021). Regulation of plasma volume in male lowlanders during 4 days of exposure to hypobaric hypoxia equivalent to 3500 m altitude. The Journal of Physiology, 599(4), 1083–1096.
Schmidt, W. (2002). Effects of intermittent exposure to high altitude on blood volume and erythropoietic activity. High Altitude Medicine & Biology, 3(2), 167–176.
Scholz, C. C., Cavadas, M. A. S., Tambuwala, M. M., Hams, E., Rodríguez, J., Kriegsheim, A. V., Cotter, P., Bruning, U., Fallon, P. G., Cheong, A., Cummins, E. P., & Taylor, C. T. (2013). Regulation of IL-1β -induced NF-κ B by hydroxylases links key hypoxic and inflammatory signaling pathways. Proceedings of the National Academy of Sciences, USA, 110(46), 18490–18495.
Источники 221–225
Schoos, A., Gabriel, C., Knab, V. M., & Fux, D. A. (2019). Activation of HIF-1α by δ-opioid receptors induces COX-2 expression in breast cancer cells and leads to paracrine activation of vascular endothelial cells. The Journal of Pharmacology and Experimental Therapeutics, 370(3), 480–489.
Schuler, B., Vogel, J., Grenacher, B., Jacobs, R. A., Arras, M., & Gassmann, M. (2012). Acute and chronic elevation of erythropoietin in the brain improves exercise performance in mice without inducing erythropoiesis. FASEB Journal, 26(9), 3884–3890.
Scott, B. R., Slattery, K. M., Sculley, D. V., Lockhart, C., & Dascombe, B. J. (2017). Acute physiological responses to moderate-load resistance exercise in hypoxia. The Journal of Strength & Conditioning Research, 31, 1973–1981.
Semenza, G. L. (2001). HIF-1 and mechanisms of hypoxia sensing. Current Opinion in Cell Biology, 13(2), 167–171.
Semenza, G. L. (2012). Hypoxia-inducible factors in physiology and medicine. Cell, 148(3), 399–408.
Источники 226–227
Serebrovska, T. V., Portnychenko, A. G., Drevytska, T. I., Portnichenko, V. I., Xi, L., Egorov, E., Gavalko, A. V., Naskalova, S., Chizhova, V., & Shatylo, V. B. (2017). Intermittent hypoxia training in prediabetes patients: Beneficial effects on glucose homeostasis, hypoxia tolerance and gene expression. Experimental Biology and Medicine, 242(15), 1542–1552.
Serebrovska, Z. O., Serebrovska, T. V., Kholin, V. A., Tumanovska, L. V., Shysh, A. M., Pashevin, D. A., Goncharov, S. V., Stroy, D., Grib, O. N., Shatylo, V. B., Bachinskaya, N. Y.u., Egorov, E., Xi, L., & Dosenko, V. E. (2019). Intermittent hypoxia-hyperoxia training improves cognitive function and decreases circulating biomarkers of Alzheimer’s disease in patients with mild cognitive impairment: A pilot study. International Journal of Molecular Sciences, 20(21), 5405. [ОТОЗВАНА 7 мая 2024 года; DOI уведомления 10.3390/ijms25095039.]
Источники 228–230
Serebrovska, Z. O., Xi, L., Tumanovska, L. V., Shysh, A. M., Goncharov, S. V., Khetsuriani, M., Kozak, T. O., Pashevin, D. A., Dosenko, V. E., Virko, S. V., Kholin, V. A., Grib, O. N., Utko, N. A., Egorov, E., Polischuk, A. O., & Serebrovska, T. V. (2022). Response of circulating inflammatory markers to intermittent hypoxia-hyperoxia training in healthy elderly people and patients with mild cognitive impairment. Life, 12(3), 432.
Serebrovskaya, T. V., Manukhina, E. B., Smith, M. L., Downey, H. F., & Mallet, R. T. (2008). Intermittent hypoxia: Cause of or therapy for systemic hypertension? Experimental Biology and Medicine, 233(6), 627–650.
Serebrovskaya, T. V., Nikolsky, I. S., Nikolska, V. V., Mallet, R. T., & Ishchuk, V. A. (2011). Intermittent hypoxia mobilizes hematopoietic progenitors and augments cellular and humoral elements of innate immunity in adult men. High Altitude Medicine & Biology, 12(3), 243–252.
Источники 231–236
Shatilo, V. B., Korkushko, O. V., Ischuk, V. A., Downey, H. F., & Serebrovskaya, T. V. (2008). Effects of intermittent hypoxia training on exercise performance, hemodynamics, and ventilation in healthy senior men. High Altitude Medicine & Biology, 9(1), 43–52.
Sheikhbahaei, S. (2020). Physiology: New Insights into central oxygen sensing. Current Biology, 30(17), R1004–R1006.
Shpilka, T., & Haynes, C. M. (2018). The mitochondrial UPR: Mechanisms, physiological functions and implications in ageing. Nature Reviews Molecular Cell Biology, 19(2), 109–120.
Siebenmann, C., Robach, P., & Lundby, C. (2017). Regulation of blood volume in lowlanders exposed to high altitude. Journal of Applied Physiology, 123(4), 957–966.
Simon, M. C., & Keith, B. (2008). The role of oxygen availability in embryonic development and stem cell function. Nature Reviews Molecular Cell Biology, 9(4), 285–296.
Smith, K. A., Waypa, G. B., & Schumacker, P. T. (2017). Redox signaling during hypoxia in mammalian cells. Redox Biology, 13, 228–234.
Источники 237–240
Smythies, J. A., Sun, M., Masson, N., Salama, R., Simpson, P. D., Murray, E., Neumann, V., Cockman, M. E., Choudhry, H., Ratcliffe, P. J., & Mole, D. R. (2019). Inherent DNA-binding specificities of the HIF-1α and HIF-2α transcription factors in chromatin. EMBO Reports, 20(1), e46401.
Soliz, J., Joseph, V., Soulage, C., Becskei, C., Vogel, J., Pequignot, J. M., Ogunshola, O., & Gassmann, M. (2005). Erythropoietin regulates hypoxic ventilation in mice by interacting with brainstem and carotid bodies. The Journal of Physiology, 568(2), 559–571.
Soliz, J., Thomsen, J. J., Soulage, C., Lundby, C., & Gassmann, M. (2009). Sex-dependent regulation of hypoxic ventilation in mice and humans is mediated by erythropoietin. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 296(6), R1837–R1846.
Soo, J., Raman, A., Lawler, N. G., Goods, P. S. R., Deldicque, L., Girard, O., & Fairchild, T. J. (2023). The role of exercise and hypoxia on glucose transport and regulation. European Journal of Applied Physiology, 123(6), 1147–1165.
Источники 241–245
Sorce, S., & Krause, K. H. (2009). NOX enzymes in the central nervous system:From signaling to disease. Antioxidants & Redox Signaling, 11(10), 2481–2504.
Spaulding, H. R., & Yan, Z. (2022). AMPK and the adaptation to exercise. Annual Review of Physiology, 84(1), 209–227.
Spliethoff, K., Meier, D., Aeberli, I., Gassmann, M., Langhans, W., Maggiorini, M., Lutz, T. A., & Goetze, O. (2013). Reduced insulin sensitivity as a marker for acute mountain sickness? High Altitude Medicine & Biology, 14(3), 240–250.
Stray-Gundersen, S., Massoudian, S. D., Wojan, F., Tanaka, H., & Lalande, S. (2022). Hypoxic preconditioning reduces endothelial ischemia-reperfusion injury in older adults. American Journal of Physiology. Regulatory, Integrative and Comparative Physiology, 323(5), R832–R838.
Stuckless, T. J. R., Vermeulen, T. D., Brown, C. V., Boulet, L. M., Shafer, B. M., Wakeham, D. J., Steinback, C. D., Ayas, N. T., Floras, J. S., & Foster, G. E. (2020). Acute intermittent hypercapnic hypoxia and sympathetic neurovascular transduction in men. The Journal of Physiology, 598(3), 473–487.
Источники 246–250
Sussman, M. A., Völkers, M., Fischer, K., Bailey, B., Cottage, C. T., Din, S., Gude, N., Avitabile, D., Alvarez, R., Sundararaman, B., Quijada, P., Mason, M., Konstandin, M. H., Malhowski, A., Cheng, Z., Khan, M., & Mcgregor, M. (2011). Myocardial AKT: The omnipresent nexus. Physiological Reviews, 91(3), 1023–1070.
Syed, Z., Lin, H.o-S., & Mateika, J. H. (2013). The impact of arousal state, sex, and sleep apnea on the magnitude of progressive augmentation and ventilatory long-term facilitation. Journal of Applied Physiology, 114(1), 52–65.
Tan, A. Q., Barth, S., & Trumbower, R. D. (2020). Acute intermittent hypoxia as a potential adjuvant to improve walking following spinal cord injury: Evidence, challenges, and future directions. Current Physical Medicine and Rehabilitation Reports, 8(3), 188–198.
Taylor, C. T., & Colgan, S. P. (2017). Regulation of immunity and inflammation by hypoxia in immunological niches. Nature Reviews Immunology, 17(12), 774–785.
Taylor, C. T., & Scholz, C. C. (2022). The effect of HIF on metabolism and immunity. Nature Reviews Nephrology, 18(9), 573–587.
Источники 251–255
Teppema, L. J. (2018). CrossTalk opposing view: The hypoxic ventilatory response does not include a central, excitatory hypoxia sensing component. The Journal of physiology, 596(15), 2939–2941.
Teppema, L. J., & Dahan, A. (2010). The ventilatory response to hypoxia in mammals: Mechanisms, measurement, and analysis. Physiological Reviews, 90(2), 675–754.
Terraneo, L., Paroni, R., Bianciardi, P., Giallongo, T., Carelli, S., Gorio, A., & Samaja, M. (2017). Brain adaptation to hypoxia and hyperoxia in mice. Redox Biology, 11, 12–20.
Tester, N. J., Fuller, D. D., Fromm, J. S., Spiess, M. R., Behrman, A. L., & Mateika, J. H. (2014). Long-term facilitation of ventilation in humans with chronic spinal cord injury. American Journal of Respiratory and Critical Care Medicine, 189(1), 57–65.
Timon, R., González-Custodio, A., Vasquez-Bonilla, A., Olcina, G., & Leal, A. (2022). Intermittent hypoxia as a therapeutic tool to improve health parameters in older adults. International Journal of Environmental Research and Public Health, 19(9), 5339.
Источники 256–260
Tobin, B., Costalat, G., & Renshaw, G. M. (2020). Intermittent not continuous hypoxia provoked haematological adaptations in healthy seniors: Hypoxic pattern may hold the key. European Journal of Applied Physiology, 120(3), 707–718.
Tobin, B., Costalat, G., & Renshaw, G. M. C. (2022). Pre-acclimation to altitude in young adults: Choosing a hypoxic pattern at sea level which provokes significant haematological adaptations. European Journal of Applied Physiology, 122(2), 395–407.
Torres-Torrelo, H., Ortega-Sáenz, P., Gao, L., & López-Barneo, J. (2021). Lactate sensing mechanisms in arterial chemoreceptor cells. Nature Communications, 12(1), 4166.
Trumbower, R. D., Jayaraman, A., Mitchell, G. S., & Rymer, W. Z. (2012). Exposure to acute intermittent hypoxia augments somatic motor function in humans with incomplete spinal cord injury. Neurorehabilitation and Neural Repair, 26(2), 163–172.
Van Meijel, R. L. J., Vliex, L. M. M., Hartwig, S., Lehr, S., Al-Hasani, H., Blaak, E. E., & Goossens, G. H. (2023). The impact of mild hypoxia exposure on myokine secretion in human obesity. International Journal of Obesity, 47(6), 520–527.
Источники 261–264
Veglio, M., Maule, S., Cametti, G., Cogo, A., Lussiana, L., Madrigale, G., & Pecchio, O. (1999). The effects of exposure to moderate altitude on cardiovascular autonomic function in normal subjects. Clinical Autonomic Research: Official Journal of the Clinical Autonomic Research Society, 9(3), 123–127.
Vermeulen, T. D., Benbaruj, J., Brown, C. V., Shafer, B. M., Floras, J. S., & Foster, G. E. (2020). Peripheral chemoreflex contribution to ventilatory long-term facilitation induced by acute intermittent hypercapnic hypoxia in males and females. The Journal of Physiology, 598(20), 4713–4730.
Volkova, Y. L., Pickel, C., Jucht, A. E., Wenger, R. H., & Scholz, C. C. (2022). The asparagine hydroxylase FIH: A unique oxygen sensor. Antioxidants & Redox Signaling, 37(13–15), 913–935.
Wadhwa, H., Gradinaru, C., Gates, G. J., Badr, M. S., & Mateika, J. H. (2008). Impact of intermittent hypoxia on long-term facilitation of minute ventilation and heart rate variability in men and women: do sex differences exist? Journal of Applied Physiology, 104(6), 1625–1633.
Источники 265–268
Wakhloo, D., Scharkowski, F., Curto, Y., Javed Butt, U., Bansal, V., Steixner-Kumar, A. A., Wüstefeld, L., Rajput, A., Arinrad, S., Zillmann, M. R., Seelbach, A., Hassouna, I., Schneider, K., Qadir Ibrahim, A., Werner, H. B., Martens, H., Miskowiak, K., Wojcik, S. M., Bonn, S., Nacher, J., Nave, K.-A., & Ehrenreich, H. (2020). Functional hypoxia drives neuroplasticity and neurogenesis via brain erythropoietin. Nature Communications, 11(1), 1313.
Walter, P., & Ron, D. (2011). The unfolded protein response: From stress pathway to homeostatic regulation. Science (New York, NY), 334(6059), 1081–1086.
Wang, G. L., Jiang, B. H., Rue, E. A., & Semenza, G. L. (1995). Hypoxia-inducible factor 1 is a basic-helix-loop-helix-PAS heterodimer regulated by cellular O2 tension. Proceedings of the National Academy of Sciences, USA, 92(12), 5510–5514.
Wang, H., Shi, X., Schenck, H., Hall, J. R., Ross, S. E., Kline, G. P., Chen, S., Mallet, R. T., & Chen, P. (2020). Intermittent hypoxia training for treating mild cognitive impairment: A pilot study. American Journal of Alzheimers Disease and Other Dementias, 35(17), 153331751989672.
Источники 269–274
Willie, C. K., Tzeng, Y.u-C., Fisher, J. A., & Ainslie, P. N. (2014). Integrative regulation of human brain blood flow. The Journal of Physiology, 592(5), 841–859.
Wu, J., Li, P., Wu, X., & Chen, W. (2015). Chronic intermittent hypoxia decreases pain sensitivity and increases the expression of HIF1α and opioid receptors in experimental rats. Sleep & Breathing = Schlaf & Atmung, 19, 561–568.
Xing, T., Pilowsky, P. M., & Fong, A. Y. (2014). Mechanism of sympathetic activation and blood pressure elevation in humans and animals following acute intermittent hypoxia. Progress in Brain Research, 209, 131–146.
Yan, W., Chen, Z., Chen, J., & Chen, H. (2016). Isoflurane preconditioning protects rat brain from ischemia reperfusion injury via up-regulating the HIF-1alpha expression through Akt/mTOR/s6K activation. Cellular and Molecular Biology, 62, 38–44.
Yuan, G., Khan, S. A., Luo, W., Nanduri, J., Semenza, G. L., & Prabhakar, N. R. (2011). Hypoxia-inducible factor 1 mediates increased expression of NADPH oxidase-2 in response to intermittent hypoxia. Journal of Cellular Physiology, 226(11), 2925–2933.
Zenewicz, L. A. (2017). Oxygen Levels and Immunological Studies. Frontiers in Immunology, 8, 324.
Источники 275–277
Zhang, J., Haddad, G. G., & Xia, Y. (2000). delta-, but not muand kappa-, opioid receptor activation protects neocortical neurons from glutamate-induced excitotoxic injury. Brain research, 885(2), 143–153.
Zhang, J.-M., & An, J. (2007). Cytokines, inflammation, and pain. International Anesthesiology Clinics, 45(2), 27–37.
Zhao, H., Ren, C., Chen, X., & Shen, J. (2012). From rapid to delayed and remote postconditioning: The evolving concept of ischemic postconditioning in brain ischemia. Current drug targets, 13(2), 173–187.
Технология и практика
Практическая организация дозированных дыхательных процедур описана отдельно: принципы IHHT, чередование кислородных режимов и биофидбэк.